Biologie · Seconde · 14 min de lecture
La sélection naturelle : un tri sans intention
Variabilité héréditaire, pression de sélection, reproduction différentielle, modification des fréquences alléliques ; exemples (phalène du bouleau, résistance aux antibiotiques).
Chapitre du programme : La Terre, la vie et l'organisation du vivant
Bloc 1 sur 7 · Comprendre
Comprendre : varier d'abord, trier ensuite
La sélection naturelle est un mécanisme qui fait évoluer les populations. Pour le comprendre, il faut trois ingrédients, dans cet ordre — et l'ordre est toute l'affaire.
Premier ingrédient : une variabilité héréditaire. Dans une population — l'ensemble des individus d'une même espèce vivant au même endroit —, les individus ne sont pas identiques : ils portent des allèles différents, ces versions d'un même gène que tu connais depuis la 3e. Cette variation naît de mutations, des modifications de la séquence de l'ADN qui surviennent au hasard, sans lien avec les besoins de l'organisme. Point capital : la variation existe avant que le milieu n'intervienne.
Deuxième ingrédient : une pression de sélection. Le milieu rend la vie plus ou moins difficile selon les caractères : un prédateur repère mieux certaines proies, un produit toxique épargne certains organismes, un climat avantage certains pelages. On appelle pression de sélection ce facteur du milieu qui fait que tous les individus n'ont pas les mêmes chances.
Troisième ingrédient : une reproduction différentielle. Les individus avantagés survivent davantage et laissent plus de descendants que les autres. Comme leurs caractères sont héréditaires, la génération suivante compte une part plus grande de porteurs de l'allèle avantageux. Génération après génération, la fréquence de cet allèle — sa part parmi tous les exemplaires du gène dans la population — augmente.
C'est tout. La sélection naturelle n'est pas une force qui « veut » quelque chose : c'est un tri statistique, répété à chaque génération, exercé par le milieu sur une variation qui préexiste.
L'exemple historique du programme : la phalène du bouleau, un papillon de nuit qui existe en forme claire et en forme sombre. Sur les troncs clairs, les oiseaux repèrent mieux les formes sombres ; sur les troncs noircis par les suies industrielles, l'avantage s'inverse. En Angleterre, la forme sombre — signalée pour la première fois près de Manchester en 1848 — représentait environ % des individus de cette région en 1895 : en un demi-siècle de pollution, le tri exercé par les oiseaux avait retourné les proportions.
Retiens la chronologie, elle défait la plupart des erreurs : d'abord la variation (au hasard), ensuite le tri (par le milieu), enfin le changement des fréquences (dans la population).
Bloc 2 sur 7 · Approfondir
Approfondir : ni projet, ni progrès, ni individu
L'erreur à démonter : la girafe qui tend le cou. La version fausse, dite finaliste — qui prête un but à la nature —, raconte que la girafe a allongé son cou « à force de le tendre » vers les feuilles hautes, puis a transmis ce cou allongé. C'était l'explication de Lamarck, au début du XIXe siècle, et elle est doublement réfutée. D'une part, un caractère acquis par l'usage — un muscle développé, un cou étiré — ne s'inscrit pas dans l'ADN : il ne se transmet pas. D'autre part, la version darwinienne inverse la logique : dans une population ancestrale, des girafes au cou déjà plus long, par variation héréditaire née au hasard, se nourrissaient mieux et laissaient plus de descendants. Le cou ne s'est pas allongé pour atteindre les feuilles ; les porteuses de cous plus longs ont été triées par le milieu.
Méfie-toi des formulations avec « pour », « afin de », « avoir besoin de » : en biologie de l'évolution, elles signalent presque toujours un raisonnement finaliste, donc faux.
La sélection n'agit pas sur l'individu. Un individu naît, vit et meurt avec le même génotype : il ne se « transforme » pas sous l'effet de la sélection. Ce qui change, c'est la population : la part de chaque variant d'une génération à la suivante. C'est pourquoi la sélection se mesure par des fréquences — des pourcentages — et jamais par l'état d'un organisme.
L'antibiotique ne crée pas la résistance. Quand une population de bactéries devient résistante après un traitement, l'intuition dit que le produit a « rendu » les bactéries résistantes. C'est faux : la mutation de résistance préexistait, chez quelques bactéries, avant tout contact avec l'antibiotique. On l'a démontré en 1952 : Joshua et Esther Lederberg ont fabriqué des copies conformes d'une même culture bactérienne et montré que les colonies résistantes occupaient les mêmes positions sur des répliques jamais exposées à l'antibiotique — la résistance était là avant. Le traitement ne fabrique rien : il trie, en éliminant les sensibles et en laissant le champ libre aux rares résistantes. C'est aussi pourquoi le mauvais usage des antibiotiques est un enjeu de santé publique : chaque traitement est une pression de sélection.
L'évolution ne va pas « vers le mieux ». La sélection favorise ce qui avantage ici et maintenant, dans un milieu donné. Que le milieu change, et l'avantage s'inverse : au XXe siècle, quand l'air anglais est redevenu plus propre et les troncs plus clairs, la forme claire de la phalène est redevenue majoritaire. Aucun « progrès », aucun sommet à atteindre : une adaptation est toujours locale et provisoire. Une espèce n'est jamais « plus évoluée » qu'une autre — seulement adaptée à un autre milieu.
Et le hasard, dans tout ça ? La sélection est un tri orienté par l'avantage reproductif. Mais il existe un second mécanisme d'évolution, où les fréquences changent sans aucun avantage, par pur hasard : la dérive génétique. C'est l'objet de la prochaine leçon, et la distinction entre les deux est l'un des attendus majeurs de l'année.
Bloc 3 sur 7 · Exemple
Exemple guidé : des fréquences qui basculent
On modélise une population de phalènes du bouleau sur des troncs noircis par les suies. Les données sont celles d'une population modélisée — des valeurs choisies pour rendre le calcul exact, le mécanisme étant, lui, bien réel.
La population compte individus : formes sombres et formes claires. Les oiseaux repèrent mieux les formes claires sur fond sombre : d'une génération à l'autre, % des formes sombres et % des formes claires survivent et se reproduisent.
1. Fréquence initiale de la forme sombre. La fréquence rapporte l'effectif au total de la population :
2. Effectifs des survivants. Le taux de survie s'applique à l'effectif de chaque forme :
3. Fréquence après sélection. Le total des survivants est . La fréquence de la forme sombre parmi eux :
4. Mesurer le déplacement. La fréquence de la forme sombre est passée de % à % : une hausse de points de pourcentage en une seule génération de sélection. (On dit bien « points » : c'est une différence entre deux pourcentages, pas un pourcentage d'augmentation.)
5. Interpréter — et ne pas sur-interpréter. Aucun papillon n'a changé de couleur : chaque individu a gardé son phénotype de la naissance à la mort. Ce qui a changé, ce sont les proportions dans la population, parce que la survie n'était pas la même pour les deux formes. Si la pression persiste, le tri se répète à chaque génération et la fréquence continue de monter — mais chiffrer les générations suivantes exigerait de connaître les taux de survie futurs : notre calcul ne vaut que pour la génération étudiée.
Remarque : les effectifs survivants sont ici égaux ( et ) alors que les formes claires étaient quatre fois plus nombreuses au départ — c'est exactement l'effet d'un taux de survie quatre fois plus faible. Le tri n'a pas besoin d'éliminer tous les désavantagés pour déplacer fortement les fréquences.
Bloc 4 sur 7 · Visualiser
Visualiser : le tri qui déplace les fréquences
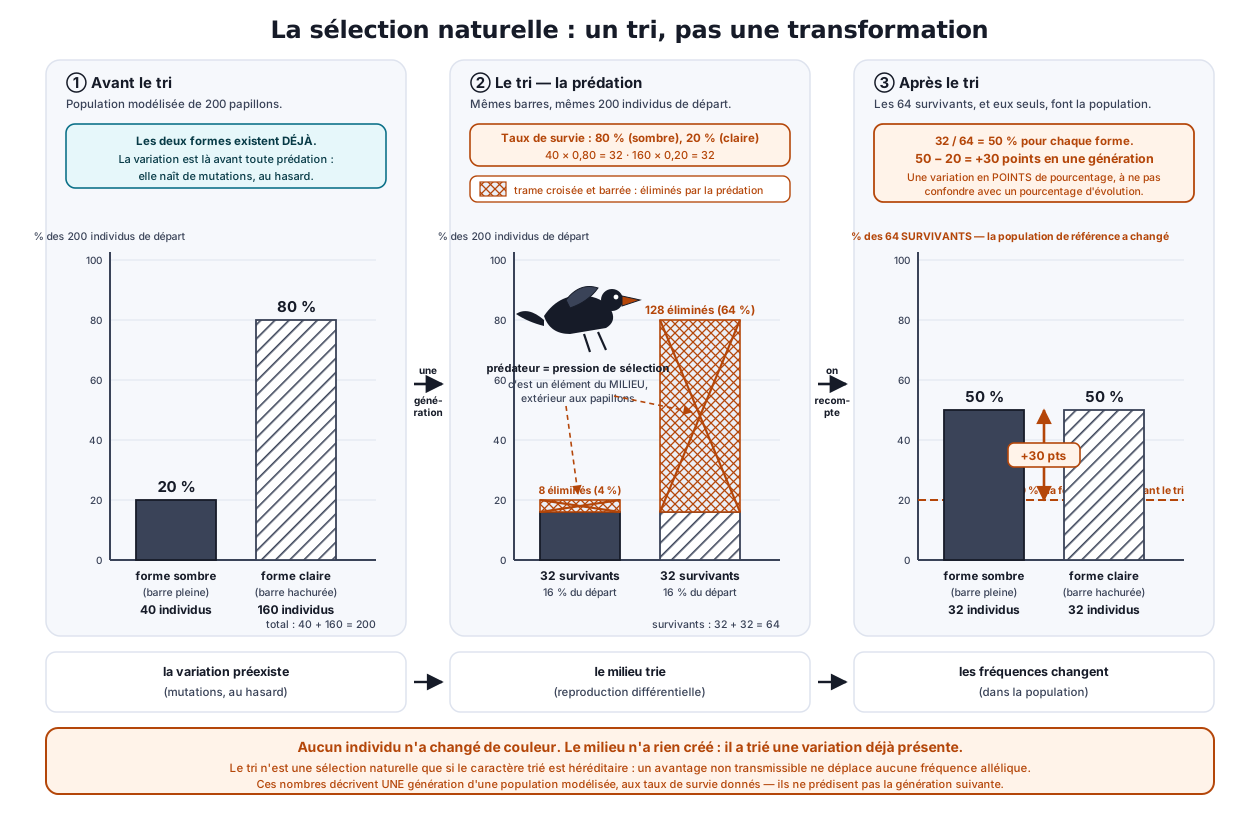
Figure (fig.biology.selection-frequency-shift, SVG programmatique à produire) : le calcul de l'exemple guidé mis en image, en trois panneaux alignés de gauche à droite, reliés par des flèches de temps.
- Panneau 1, « avant le tri » : un diagramme en barres, axe vertical gradué de à % partant de zéro, deux barres : forme sombre %, forme claire %. Les formes sont distinguées par un motif (barre pleine pour la sombre, hachurée pour la claire) et non par la seule couleur. Sous les barres, les effectifs : et , total .
- Panneau 2, « le tri » : le même couple de barres, dont une partie est barrée d'une trame « éliminés par la prédation » ; une étiquette porte les taux de survie ( % pour la forme sombre, % pour la claire) et un pictogramme d'oiseau matérialise la pression de sélection. Sous les barres, les survivants : et .
- Panneau 3, « après le tri » : les fréquences recalculées parmi les survivants : forme sombre %, forme claire %. Une double flèche verticale cote le déplacement de la barre sombre : « points en une génération ».
- Un bandeau inférieur aligne trois mentions, une par panneau : « la variation préexiste (mutations, au hasard) » ; « le milieu trie (reproduction différentielle) » ; « les fréquences changent (dans la population) ».
- Un cartouche d'alerte : « Aucun individu n'a changé de couleur. Le milieu n'a rien créé : il a trié une variation déjà présente. »
Ce qu'il faut lire. Suis la barre « forme sombre » d'un panneau à l'autre : elle monte de % à % sans qu'aucun papillon ne se transforme — seule la composition de la population bouge. Vérifie ensuite, sur le panneau 2, que la pression de sélection est un élément du milieu (l'oiseau), extérieur aux papillons : le tri ne vient pas d'une volonté des organismes.
Pour une lecture sans l'image : la figure enchaîne trois diagrammes en barres aux axes gradués de zéro à cent pour cent. Le premier montre vingt pour cent de formes sombres et quatre-vingts pour cent de formes claires, pour deux cents individus. Le deuxième superpose aux barres la part éliminée par la prédation, avec les taux de survie de quatre-vingts et vingt pour cent, un oiseau figurant la pression de sélection ; il reste trente-deux survivants de chaque forme. Le troisième donne les fréquences parmi les survivants, cinquante et cinquante pour cent, avec une cote indiquant une hausse de trente points pour la forme sombre. Un bandeau rappelle l'ordre du mécanisme — variation préexistante, tri par le milieu, changement des fréquences — et un cartouche précise qu'aucun individu ne s'est transformé.
Bloc 5 sur 7 · Formules
Les calculs de la sélection
| Relation | Vérification sur l'exemple | Domaine de validité |
|---|---|---|
| fréquence effectif total | % | le total est celui de sa génération : survivants rapportés au total des survivants |
| survivants effectif taux | le taux s'applique à l'effectif du phénotype concerné, pas au total | |
| variation en points | points | différence de deux pourcentages — ne pas confondre avec un pourcentage d'évolution |
Unités. Les fréquences s'expriment en pourcentage (%) ; leurs variations en points de pourcentage. Les effectifs sont des dénombrements sans unité.
Domaine de validité, essentiel ici. Ces calculs décrivent une génération d'une population modélisée, aux taux de survie donnés. Ils ne prédisent pas les générations suivantes (les taux peuvent changer avec le milieu) et ne disent rien d'un individu : une fréquence est une grandeur de population. Enfin, le tri n'est une sélection naturelle que si le caractère trié est héréditaire — un avantage non transmissible ne déplace pas les fréquences alléliques.
Vocabulaire. Pression de sélection : facteur du milieu qui rend survie ou reproduction inégales selon les caractères. Reproduction différentielle : différence de nombre de descendants entre variants. Adaptation : caractère héréditaire favorisé par le milieu actuel — locale et provisoire par construction.
Bloc 6 sur 7 · Pièges
Pièges fréquents
- Formuler la sélection de manière finaliste. « La girafe a allongé son cou pour atteindre les feuilles » : doublement faux. Un caractère acquis par l'usage ne s'inscrit pas dans l'ADN et ne se transmet pas ; et la variation ne répond pas à un besoin — elle naît au hasard, avant le tri. La formulation juste : des girafes au cou déjà plus long ont laissé plus de descendants. Traque les « pour », « afin de », « a eu besoin de » dans tes propres phrases.
- Croire que la sélection agit sur les individus. Un individu garde son génotype de la naissance à la mort ; il ne s'améliore pas sous l'effet du tri. La sélection modifie des fréquences dans la population, d'une génération à la suivante — c'est pour cela qu'on la mesure en pourcentages.
- Penser que les bactéries deviennent résistantes « à cause » de l'antibiotique. La mutation de résistance préexiste au traitement, comme l'a montré l'expérience des répliques de 1952. L'antibiotique ne crée rien : il élimine les sensibles et laisse les rares résistantes se multiplier. Dire « le produit a rendu les bactéries résistantes » confond le tri et la création de la variation.
- Croire que l'évolution va « vers le mieux ». La sélection favorise ce qui avantage dans le milieu actuel. Le milieu change ? L'avantage s'inverse — la phalène claire a regagné du terrain quand l'air s'est assaini. Ni progrès, ni but, ni espèce « plus évoluée » qu'une autre.
- Résumer la sélection à « la survie du plus fort ». Ce qui compte n'est pas la force, ni même la seule survie : c'est le nombre de descendants laissés. Un variant discret mais fécond l'emporte sur un variant robuste et stérile.
- Croire qu'un caractère musclé, appris ou acquis se transmet. Entraînement, bronzage, apprentissage : rien de tout cela ne modifie la séquence d'ADN transmise. Seuls les caractères héréditaires — portés par les allèles — donnent prise à la sélection naturelle.
- Oublier que le tri exige une variation préalable. Sans variabilité héréditaire, pas de sélection possible : le milieu ne peut pas trier des individus tous identiques. C'est pourquoi mutation (source de variation) et sélection (tri de la variation) sont deux étapes distinctes, jamais interchangeables.
Bloc 7 sur 7 · Vérifier
Vérifier : calculer une reproduction différentielle
À quoi t'attendre. Le modèle d'entraînement associé à cette leçon décrit une population modélisée soumise à une pression de sélection — phalènes et prédation, bactéries et antibiotique, ou insectes et insecticide — avec les effectifs des deux phénotypes et leurs taux de survie. Il demande un effectif de survivants, une fréquence parmi les survivants, ou une variation en points de pourcentage. La réponse est un nombre exact.
Énoncé type — entièrement corrigé.
Dans une culture expérimentale, une population modélisée de bactéries compte bactéries porteuses d'un allèle de résistance et bactéries sensibles. Après un traitement antibiotique, % des résistantes et % des sensibles survivent et se divisent.
Quelle est la fréquence des bactéries résistantes parmi les survivantes, en pourcentage ?
Correction.
Survivantes résistantes : . Survivantes sensibles : .
Total des survivantes : .
Fréquence des résistantes parmi les survivantes :
Avant le traitement, cette fréquence valait % : une génération de sélection l'a doublée. Aucune bactérie n'est « devenue » résistante — l'allèle préexistait, le traitement a trié.
Auto-contrôle : une fréquence se rapporte toujours au total de sa génération — survivants sur total des survivants, jamais survivants sur effectif de départ. Et vérifie l'ordre de ton résultat : si le phénotype avantagé a le meilleur taux de survie, sa fréquence après tri doit être supérieure à sa fréquence initiale.
Sources
- BO spécial n°1 du 22 janvier 2019 — programme de sciences de la vie et de la Terre de seconde générale et technologique, thème « La Terre, la vie et l'organisation du vivant » : biodiversité, résultat et étape de l'évolution
- N. Campbell, J. Reece et al., Biologie, Pearson — chapitre sur l'évolution des populations
- C. Darwin, L'Origine des espèces, 1859
Continuer
Autres leçons — Biologie
- Le croisement monohybride : prévoir la descendance pour un gène
- Chromosomes et caryotype : l'information génétique rangée par paires
- Gènes et allèles : pourquoi deux individus ne se ressemblent pas
- Reproduction sexuée : comment les chromosomes passent d'une génération à l'autre
- Arbres phylogénétiques : lire la parenté entre les espèces
- Le système nerveux : capter, décider, commander
- La communication hormonale : un message porté par le sang
- Observer au microscope
- La cellule, unité du vivant
- Classification emboîtée du vivant
- Écosystèmes et réseaux trophiques
- Digestion et nutriments
- Respiration et échanges gazeux
- La circulation sanguine
- La cellule eucaryote : des compartiments spécialisés
- L'ADN : une double hélice porteuse d'information
- La dérive génétique : quand le hasard seul fait évoluer
- La biodiversité : trois échelles sous pression
- Cycle cellulaire et mitose : copier, puis répartir
- La réplication de l'ADN : une copie semi-conservative
- Du gène à la protéine : transcription et traduction
- Les mutations : quand la copie change le texte
- Les enzymes : des protéines qui catalysent
- L'immunité adaptative : spécifique, amplifiée, mémorisée
- La méiose : diviser par deux, et brasser
- Deux gènes à la fois : indépendants ou liés ?
- L'équilibre de Hardy-Weinberg : le modèle de référence
- Le potentiel d'action : un message tout ou rien
- La régulation de la glycémie
- Contraction musculaire et énergie
- La photosynthèse : de la lumière à la matière
- La respiration cellulaire et l'ATP
- Le cycle du carbone
- L’immunité innée : une première défense immédiate
- Cinétique michaélienne et inhibitions enzymatiques
- La vaccination : préparer la mémoire immunitaire
- Acides aminés : ionisation, zwitterion, point isoélectrique
- Échanges membranaires : diffusion, osmose, transport actif
- La PCR : copier des millions de fois une région choisie