Biologie · Terminale · 20 min de lecture
L'équilibre de Hardy-Weinberg : le modèle de référence
Fréquences alléliques p et q, fréquences génotypiques p², 2pq, q² sous hypothèse d'équilibre, conditions du modèle, écart à l'équilibre comme indice d'évolution.
Chapitre du programme : Génétique et évolution
Bloc 1 sur 7 · Comprendre
Comprendre : du couple à la population
Jusqu'ici, tout se jouait entre deux parents et leurs enfants : un croisement, un arbre, une descendance. Change d'échelle. Considère non plus un couple, mais toute une population : tous les individus d'une même espèce qui vivent au même endroit et se reproduisent entre eux, génération après génération. Que deviennent les allèles à cette échelle ?
La question qui a lancé la génétique des populations. Au début du vingtième siècle, une objection revenait sans cesse contre la génétique naissante : si un allèle est dominant, ne devrait-il pas, de génération en génération, prendre toute la place et faire disparaître l'allèle récessif ? L'intuition semble solide, et elle est fausse. En , indépendamment l'un de l'autre, le mathématicien britannique Godfrey Harold Hardy et le médecin allemand Wilhelm Weinberg ont montré que, sous certaines conditions, les fréquences des allèles dans une population ne changent pas du tout. La dominance décide de ce qui se voit, pas de ce qui se transmet.
Deux notions à ne jamais confondre. Dans une population, on peut compter deux choses très différentes.
- La fréquence allélique : quelle part de tous les allèles de ce gène présents dans la population est l'allèle ? On la note . La part de l'allèle se note . Comme il n'existe que ces deux allèles, .
- La fréquence génotypique : quelle part des individus est de génotype , quelle part est , quelle part est ?
La différence tient à ce que chaque individu diploïde porte deux allèles du gène. Une population de individus contient donc allèles de ce gène. Un individu apporte deux allèles ; un individu en apporte un ; un individu n'en apporte aucun. Compter des individus et compter des allèles, ce n'est pas la même opération.
L'idée du modèle : une urne de gamètes. Imagine que, à chaque génération, tous les individus versent leurs gamètes dans une même urne, et que les cellules-œufs se forment en tirant au hasard deux gamètes dans cette urne. Puisque chaque gamète porte un seul allèle, l'urne contient une proportion d'allèles et une proportion d'allèles . Alors :
- tirer deux fois a pour probabilité : c'est la fréquence attendue des individus ;
- tirer deux fois a pour probabilité : c'est la fréquence attendue des ;
- obtenir un et un peut se faire de deux façons — le du premier gamète et le du second, ou l'inverse — d'où la probabilité : c'est la fréquence attendue des hétérozygotes .
Modèle de Hardy-Weinberg. Si la population remplit certaines conditions, les fréquences génotypiques valent , et , et les fréquences alléliques et restent les mêmes de génération en génération. On dit que la population est à l'équilibre.
Vérification immédiate : . Les trois génotypes se partagent bien la totalité des individus.
Pourquoi les fréquences ne bougent pas. Une génération d'individus se répartit en , et ; quand elle produit à son tour des gamètes, les homozygotes ne donnent que des , les que des , et les hétérozygotes moitié moitié. En recomptant, on retrouve exactement la même proportion d'allèles dans la nouvelle urne. Rien ne se perd, rien ne s'ajoute : la reproduction sexuée, à elle seule, ne fait pas évoluer une population. C'est le résultat qui a mis fin à l'objection du début du siècle.
Bloc 2 sur 7 · Approfondir
Approfondir : les hypothèses d'un modèle de référence
Sous quelles conditions ? Le raisonnement de l'urne suppose beaucoup de choses. Les voici, énoncées comme quatre hypothèses.
- La population est de très grande taille. Le tirage des gamètes doit se comporter comme un tirage idéal. Dans une petite population, les fréquences fluctuent au hasard d'une génération à l'autre, exactement comme quelques lancers de pièce s'écartent facilement de la moitié : c'est la dérive génétique.
- Les croisements se font au hasard. Chaque individu a la même probabilité de se reproduire avec n'importe quel autre, et son génotype n'intervient pas dans le choix du partenaire. On parle de panmixie. Si les individus semblables se recherchent, l'urne ne mélange plus rien.
- La population est fermée et son génome stable : ni migration — aucun individu n'entre ni ne sort en apportant ou en emportant des allèles — ni mutation — aucun allèle ne se transforme en un autre.
- Il n'y a aucune sélection naturelle. Les trois génotypes ont exactement la même probabilité de survivre et de se reproduire ; aucun n'est avantagé.
Certains manuels comptent cinq hypothèses, en séparant l'absence de migration de l'absence de mutation. C'est la même exigence, énoncée en deux fois : rien n'entre dans le stock d'allèles, rien ne s'y transforme.
Le point le plus important de la leçon. Aucune population réelle ne vérifie ces quatre conditions à la fois. Toute population a un effectif fini, donc dérive un peu ; des individus entrent et sortent ; des mutations surviennent, rares mais inévitables ; les rencontres ne sont jamais parfaitement au hasard ; et la sélection naturelle agit partout. Le modèle de Hardy-Weinberg ne décrit donc aucune population : il décrit une population qui n'évoluerait pas.
Est-ce un défaut ? Au contraire, c'est tout son intérêt. C'est un modèle de référence, une situation de comparaison — l'équivalent, pour la génétique des populations, de ce qu'est en mécanique le mouvement sans frottement : personne ne l'observe, tout le monde s'en sert pour mesurer les frottements.
S'en servir, c'est comparer. La démarche tient en trois temps.
- On détermine les fréquences alléliques réellement observées, en comptant les allèles de la population.
- On calcule les effectifs que le modèle prévoirait : , et , où est l'effectif total.
- On compare aux effectifs observés. S'ils coïncident, rien n'indique que la population évolue pour ce gène. S'ils s'en écartent nettement, c'est qu'au moins une des quatre hypothèses n'est pas respectée : la population évolue, et l'écart est le signal qui invite à chercher laquelle — sélection, dérive, migration, choix du partenaire.
Attention : l'écart dit qu'il se passe quelque chose, il ne dit pas quoi. Nommer la cause demande d'autres informations que le seul tableau des effectifs. Et à ce niveau, on ne juge que des écarts massifs ; décider si un petit écart est significatif demande un test statistique qui n'est pas au programme de terminale.
Application : une maladie autosomique récessive. C'est l'usage le plus classique du modèle, et il repose sur une seule idée. Pour un caractère récessif, seuls les individus présentent le caractère. Or la fréquence des vaut , et non . Donc :
La fréquence de l'allèle est la racine carrée de la fréquence des malades, jamais la fréquence des malades elle-même. Et comme , on a toujours : l'allèle est bien plus répandu que le caractère. Une fois connu, , et la fréquence des porteurs sains, les hétérozygotes, vaut . On découvre alors qu'ils sont très nombreux : la grande majorité des allèles d'une population se trouve chez des personnes qui ne présentent pas le caractère et l'ignorent.
Bloc 3 sur 7 · Exemple
Exemple guidé : deux populations, une même fréquence
Première partie — deux populations modèles. On étudie un gène à deux allèles, et , dans deux populations d'escargots de deux bois différents. Ce sont des populations construites pour l'exercice, pas des relevés de terrain. Le génotype de chacun des individus a été déterminé.
Population 1
| Génotype | Total | |||
|---|---|---|---|---|
| Effectif |
Population 2
| Génotype | Total | |||
|---|---|---|---|---|
| Effectif |
- Calculer la fréquence de l'allèle dans chaque population.
- Ces populations sont-elles à l'équilibre de Hardy-Weinberg ? On considérera qu'elles le sont si les effectifs observés coïncident avec les effectifs attendus.
---
1. Les fréquences alléliques. Chaque individu porte deux allèles du gène : la population compte allèles. Les allèles sont apportés deux par deux par les et un par un par les .
Population 1 :
Population 2 :
Les deux populations ont exactement les mêmes fréquences alléliques. Retiens ce résultat : il montre à lui seul que fréquence allélique et fréquences génotypiques sont deux informations distinctes. Deux populations peuvent contenir la même proportion d'allèles et les répartir tout autrement entre les individus.
2. Les effectifs attendus. Ils sont les mêmes pour les deux populations, puisqu'ils ne dépendent que de , de et de :
Contrôle : .
Population 1 : les effectifs observés sont , et — exactement les effectifs attendus. Rien, dans ce tableau, n'indique que cette population évolue pour ce gène. Elle est à l'équilibre de Hardy-Weinberg.
Population 2 : les effectifs observés sont , et , à comparer à , et . L'écart le plus parlant porte sur les hétérozygotes :
Il manque quarante pour cent des hétérozygotes attendus, et les deux catégories d'homozygotes sont en excès. Un tel écart n'est pas une petite irrégularité : cette population n'est pas à l'équilibre pour ce gène. Au moins une des quatre hypothèses du modèle n'y est pas respectée — et le tableau seul ne permet pas de dire laquelle. Un déficit d'hétérozygotes est compatible, par exemple, avec des croisements qui ne se font pas au hasard, ou avec une population en réalité découpée en groupes qui ne se rencontrent pas ; conclure exigerait d'autres observations.
Seconde partie — une maladie autosomique récessive. La mucoviscidose est une maladie génétique autosomique récessive : seules les personnes homozygotes sont malades. Dans les populations d'origine européenne, environ une naissance sur est atteinte. On suppose la population à l'équilibre de Hardy-Weinberg.
Quelle est la fréquence de l'allèle responsable ? Et celle des porteurs sains ?
Les malades sont les homozygotes récessifs, dont la fréquence vaut :
La valeur , c'est-à-dire , n'est pas la fréquence de l'allèle : c'est celle des malades. L'allèle est cinquante fois plus fréquent.
Les porteurs sains sont les hétérozygotes, de fréquence avec :
c'est-à-dire environ une personne sur . Compare : de personnes malades, de porteurs sains — quatre-vingt-dix-huit fois plus. C'est ce que dit le modèle : dans une population, l'immense majorité des allèles récessifs rares est cachée chez des hétérozygotes, et c'est pour cette raison qu'un tel allèle ne disparaît pas.
Bloc 4 sur 7 · Visualiser
Visualiser : l'urne des allèles
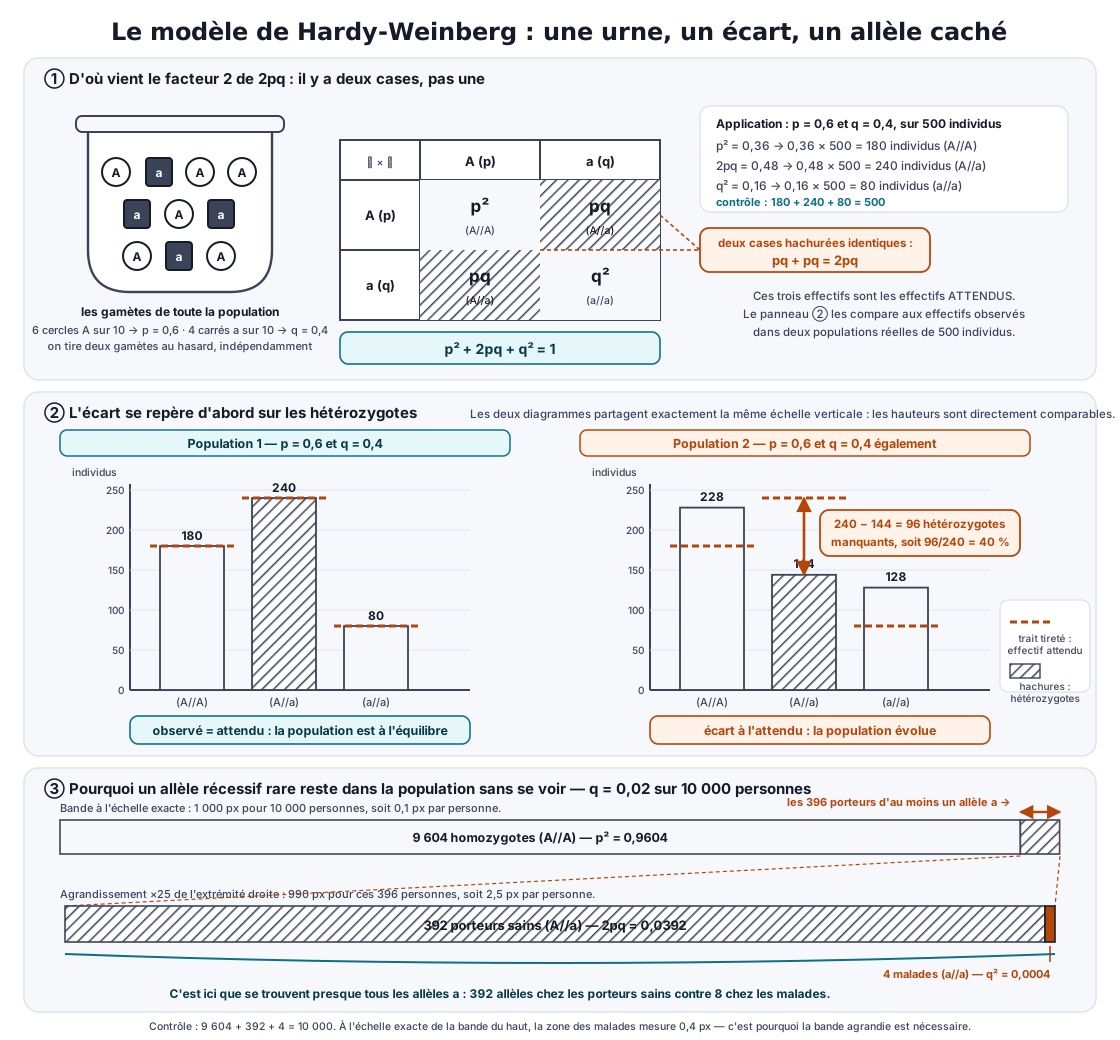
Figure (fig.biology.hardy-weinberg-urne, image programmatique à produire) : trois panneaux, du mécanisme au diagnostic.
- Panneau du haut, l'urne. Une urne contenant des jetons de deux formes, une part de jetons marqués et une part de jetons marqués , avec la légende « les gamètes de toute la population ». En dessous, un tableau à double entrée à quatre cases : en colonnes les gamètes du premier parent, avec la probabilité et avec la probabilité ; en lignes ceux du second, de même. Les quatre cases portent , , et , les deux cases étant reliées par une accolade portant « deux façons d'obtenir un hétérozygote : ». Sous le tableau, la vérification .
- Panneau du milieu, la comparaison. Deux diagrammes en barres à trois colonnes chacun, sur la même échelle verticale graduée de à individus. À gauche, la population 1 : les barres observées, , , , et les effectifs attendus figurés par de courts traits horizontaux placés exactement au sommet de chaque barre, avec la mention « observé égal attendu : équilibre ». À droite, la population 2 : les barres observées, , , , et les mêmes traits d'attendu placés à , et , nettement décalés, avec une flèche verticale sur la colonne du milieu portant « déficit de hétérozygotes, soit » et la mention « écart : la population évolue ».
- Panneau du bas, l'allèle caché. Une bande horizontale représentant personnes d'une population où la fréquence de l'allèle récessif vaut : une zone très mince étiquetée « malades, , quatre sur dix mille », une zone visible étiquetée « porteurs sains, , environ trois cent quatre-vingt-douze sur dix mille », et tout le reste étiqueté « homozygotes , ». Une accolade sous les deux premières zones porte « c'est ici que se trouvent presque tous les allèles ».
Ce qu'il faut lire. Le panneau du haut montre d'où vient le facteur de : il y a deux cases, pas une. Le panneau du milieu montre à quoi ressemble un écart au modèle, et pourquoi on le repère d'abord sur les hétérozygotes. Le panneau du bas montre pourquoi un allèle récessif rare reste dans une population sans se voir.
La figure en détail : la figure comporte trois panneaux superposés. Dans le panneau du haut, une urne contient les gamètes de toute la population sous forme de jetons de deux sortes, les uns portant l'allèle dominant, les autres l'allèle récessif, dans les proportions respectives p et q. Sous l'urne, un tableau à double entrée croise les gamètes des deux parents et donne quatre cases dont les probabilités valent p au carré, p fois q, p fois q, et q au carré ; une accolade réunit les deux cases identiques du milieu pour expliquer le facteur deux de la fréquence des hétérozygotes. Une ligne rappelle que la somme des trois fréquences génotypiques vaut un. Dans le panneau du milieu, deux diagrammes en barres, tracés sur la même échelle, comparent deux populations de cinq cents individus. À gauche, les trois barres observées atteignent exactement les repères des effectifs attendus, cent quatre-vingts, deux cent quarante et quatre-vingts : la population est à l'équilibre. À droite, les barres observées valent deux cent vingt-huit, cent quarante-quatre et cent vingt-huit, tandis que les repères attendus restent aux mêmes valeurs qu'à gauche ; une flèche verticale sur la colonne centrale indique un déficit de quatre-vingt-seize hétérozygotes, soit quarante pour cent de moins que prévu, et signale que cette population évolue. Dans le panneau du bas, une longue bande représente dix mille personnes d'une population où l'allèle récessif a une fréquence de deux pour cent : une zone très mince correspond aux quatre personnes malades, une zone bien plus large aux trois cent quatre-vingt-douze porteurs sains, et tout le reste aux homozygotes qui ne portent pas l'allèle ; une accolade souligne que la quasi-totalité des allèles récessifs se trouve chez les porteurs sains.
Bloc 5 sur 7 · Formules
Ce qu'il faut retenir
| Ce qu'il faut savoir | Énoncé |
|---|---|
| Fréquence allélique | part d'un allèle parmi les allèles du gène présents dans la population |
| Fréquence génotypique | part des individus d'un génotype donné parmi les individus |
| Modèle de Hardy-Weinberg | à l'équilibre, les fréquences génotypiques valent , et |
| Stabilité | à l'équilibre, et sont les mêmes à chaque génération : la reproduction sexuée seule ne fait pas évoluer |
| Les quatre hypothèses | grande taille, croisements au hasard, ni migration ni mutation, aucune sélection |
| Statut du modèle | référence théorique, jamais description : aucune population réelle ne vérifie les quatre hypothèses |
| Usage | comparer observé et attendu ; un écart net signale qu'au moins une hypothèse est violée, donc que la population évolue |
Les grandeurs. Les fréquences , , , et sont des nombres compris entre et , sans unité ; on les exprime souvent en pourcentage. Un effectif est un nombre d'individus. Quand on demande une fréquence, vérifie toujours si la réponse est attendue sous forme décimale ou en pourcentage.
Ce qui n'est pas au programme de terminale. Le modèle n'est appliqué ici qu'à un gène autosomique à deux allèles ; son extension aux gènes portés par le chromosome X ou aux allèles multiples relève du supérieur. On n'écrit aucun coefficient de sélection, aucune équation donnant l'évolution des fréquences au fil des générations, et l'on ne conduit aucun test statistique pour décider si un écart est significatif : les écarts proposés sont massifs et se jugent à la lecture des tableaux.
Bloc 6 sur 7 · Pièges
Pièges fréquents
- Confondre fréquence allélique et fréquence génotypique. La fréquence de l'allèle n'est pas la proportion d'individus : les hétérozygotes portent eux aussi un allèle . Souviens-toi du dénominateur : pour un décompte d'allèles, pour un décompte d'individus.
- Prendre la fréquence des malades pour la fréquence de l'allèle. Pour un caractère récessif, la fréquence des atteints vaut : il faut en prendre la racine carrée pour obtenir . Sauter cette étape divise la réponse par un facteur considérable — une fréquence d'atteints de correspond à un allèle de fréquence , cinquante fois plus grande.
- Appliquer le modèle sans regarder ses hypothèses. Écrire , , pour une population de quelques dizaines d'individus, soumise à la sélection ou traversée de migrations, c'est utiliser un modèle hors de son domaine. Le programme demande de citer les conditions avant d'appliquer les formules.
- Croire que le modèle décrit la réalité. Aucune population réelle ne vérifie les quatre hypothèses. Le modèle sert de repère : il dit ce qu'on observerait si rien ne faisait évoluer la population, et c'est l'écart à ce repère qui est instructif.
- Oublier le facteur des hétérozygotes. Un individu peut se former de deux façons, selon l'ordre des deux gamètes : la fréquence est , pas . Contrôle : la somme doit valoir exactement .
- Conclure d'un écart à sa cause. Un déficit d'hétérozygotes montre qu'une hypothèse est violée ; il ne dit pas laquelle. Sélection, dérive, migration, croisements non aléatoires : le tableau ne tranche pas, et affirmer une cause sans donnée supplémentaire est une faute de raisonnement.
- Additionner ou soustraire des fréquences alléliques et génotypiques. et se complètent à entre elles ; , et se complètent à entre elles. Les deux familles ne se mélangent jamais dans une même somme.
- Interpréter un écart minuscule. Une différence de quelques individus entre observé et attendu ne prouve rien, et l'outil qui permettrait de trancher n'est pas au programme de terminale. On ne conclut que devant un écart massif, du genre de celui de l'exemple.
Bloc 7 sur 7 · Vérifier
Vérifier : remonter des malades à l'allèle
Le modèle d'entraînement. L'exercice associé à cette leçon propose quatre familles de questions : la fréquence attendue d'un génotype quand est donné ; la fréquence allélique calculée à partir d'un tableau d'effectifs génotypiques ; la fréquence de l'allèle responsable, ou celle des porteurs sains, à partir de la fréquence d'une maladie autosomique récessive donnée dans l'énoncé ; enfin l'effectif attendu d'un génotype dans une population d'effectif connu. Un modèle voisin, sous forme d'affirmations à juger vraies ou fausses, porte sur la comparaison entre effectifs observés et effectifs attendus, sur les hypothèses du modèle et sur l'hypothèse violée dans une situation décrite.
Énoncé type. La phénylcétonurie est une maladie génétique autosomique récessive : seules les personnes homozygotes sont malades. Dans les populations européennes, environ une naissance sur est atteinte. On suppose la population à l'équilibre de Hardy-Weinberg et l'on note la fréquence de l'allèle .
Quelle est, en pourcentage, la fréquence de l'allèle dans cette population ?
Corrigé complet.
1. Identifier ce que vaut la donnée. Le caractère est récessif : les malades sont exactement les homozygotes . Or, à l'équilibre, la fréquence des vaut . La valeur donnée est donc une fréquence génotypique :
C'est le pas décisif. La fraction n'est pas la fréquence de l'allèle, c'est celle des malades.
2. Remonter à la fréquence allélique. Une fréquence est positive, on prend donc la racine carrée :
3. Exprimer en pourcentage.
Réponse : la fréquence de l'allèle vaut .
4. Prendre la mesure du résultat. La maladie touche une naissance sur dix mille, soit des personnes ; l'allèle, lui, représente des allèles de ce gène dans la population — cent fois plus. Où est passée la différence ? Chez les porteurs sains : leur fréquence vaut , soit environ de la population, c'est-à-dire à peu près une personne sur cinquante. C'est là que se trouve la quasi-totalité des allèles .
Auto-contrôle. Ai-je bien pris la racine carrée, ou ai-je recopié la fréquence des malades ? Ma valeur de est-elle comprise entre et ? Est-elle plus grande que la fréquence des malades, comme elle doit toujours l'être ? Et ai-je répondu dans l'unité demandée, décimale ou pourcentage ?
Sources
- BO spécial n°8 du 25 juillet 2019 — programme de spécialité sciences de la vie et de la Terre de terminale générale, thème « Génétique et évolution » : l'inéluctable évolution des génomes au sein des populations, modèle de Hardy-Weinberg et écart au modèle
- N. Campbell, J. Reece et al., Biologie, Pearson — chapitre consacré à l'évolution des populations : fréquences alléliques, principe de Hardy-Weinberg et ses conditions (fréquences des maladies récessives citées)
- A. Griffiths et al., Introduction à l'analyse génétique, De Boeck — passages consacrés à la génétique des populations et à l'équilibre de Hardy-Weinberg
Continuer
Autres leçons — Biologie
- Le croisement monohybride : prévoir la descendance pour un gène
- Chromosomes et caryotype : l'information génétique rangée par paires
- Gènes et allèles : pourquoi deux individus ne se ressemblent pas
- Reproduction sexuée : comment les chromosomes passent d'une génération à l'autre
- Arbres phylogénétiques : lire la parenté entre les espèces
- Le système nerveux : capter, décider, commander
- La communication hormonale : un message porté par le sang
- Observer au microscope
- La cellule, unité du vivant
- Classification emboîtée du vivant
- Écosystèmes et réseaux trophiques
- Digestion et nutriments
- Respiration et échanges gazeux
- La circulation sanguine
- La cellule eucaryote : des compartiments spécialisés
- L'ADN : une double hélice porteuse d'information
- La sélection naturelle : un tri sans intention
- La dérive génétique : quand le hasard seul fait évoluer
- La biodiversité : trois échelles sous pression
- Cycle cellulaire et mitose : copier, puis répartir
- La réplication de l'ADN : une copie semi-conservative
- Du gène à la protéine : transcription et traduction
- Les mutations : quand la copie change le texte
- Les enzymes : des protéines qui catalysent
- L'immunité adaptative : spécifique, amplifiée, mémorisée
- La méiose : diviser par deux, et brasser
- Deux gènes à la fois : indépendants ou liés ?
- Le potentiel d'action : un message tout ou rien
- La régulation de la glycémie
- Contraction musculaire et énergie
- La photosynthèse : de la lumière à la matière
- La respiration cellulaire et l'ATP
- Le cycle du carbone
- L’immunité innée : une première défense immédiate
- Cinétique michaélienne et inhibitions enzymatiques
- La vaccination : préparer la mémoire immunitaire
- Acides aminés : ionisation, zwitterion, point isoélectrique
- Échanges membranaires : diffusion, osmose, transport actif
- La PCR : copier des millions de fois une région choisie