Croire qu'un vaccin soigne une maladie déclarée (il prévient).
Confondre vaccin (prévention) et sérum (anticorps prêts, curatif).
Penser que le vaccin contient la maladie sous forme active.
Source : BO n°31 du 30 juillet 2020 — programme du cycle 4 (5e, 4e, 3e)
Seconde — 5 compétences · 5 avec exercices
Biodiversité et impact des activités humaines
Difficulté 2 sur 5
Trois échelles de biodiversité (écosystèmes, espèces, gènes), érosion de la biodiversité, fragmentation des habitats, espèces invasives, gestion durable.
Chapitre : Enjeux contemporains de la planète
Agrosystèmes et développement durable / biodiversité
Croire que la biodiversité est stable dans le temps en dehors de l'action humaine.
Penser qu'une espèce invasive est toujours exotique et agressive par nature.
Source : BO spécial n°1 du 22 janvier 2019 — programme de sciences de la vie et de la Terre de seconde générale et technologique
Dérive génétique
Difficulté 2 sur 5
Évolution aléatoire des fréquences alléliques dans les petites populations, effet fondateur, goulot d'étranglement, modélisation par tirages aléatoires.
Chapitre : La Terre, la vie et l'organisation du vivant
Croire que les cellules végétales n'ont pas de mitochondries.
Confondre paroi (végétale) et membrane plasmique.
Penser que le métabolisme est « le fait de maigrir ou grossir ».
Source : BO spécial n°1 du 22 janvier 2019 — programme de sciences de la vie et de la Terre de seconde générale et technologique
Sélection naturelle
Difficulté 2 sur 5
Variabilité héréditaire, pression de sélection, reproduction différentielle, modification des fréquences alléliques ; exemples (phalène du bouleau, résistance aux antibiotiques).
Chapitre : La Terre, la vie et l'organisation du vivant
Prérequis : Chromosomes et caryotype, Structure de l'atome
Erreurs typiques (3)
Apparier A avec C ou G avec T.
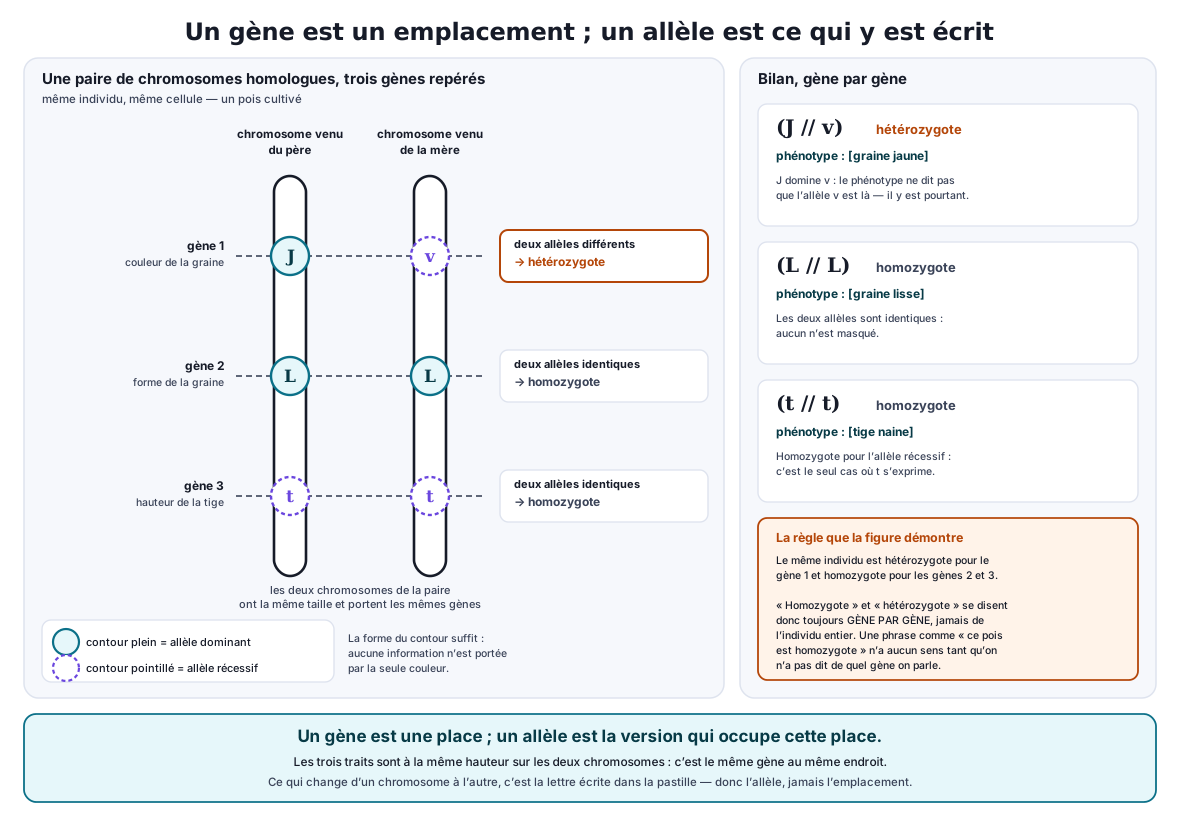
Confondre gène (portion d'ADN) et chromosome.
Croire que l'ADN des bactéries est d'une nature différente (l'ADN est universel).
Source : BO spécial n°1 du 22 janvier 2019 — programme de sciences de la vie et de la Terre de seconde générale et technologique
Première — 6 compétences · 6 avec exercices
Cycle cellulaire et mitose
Difficulté 3 sur 5
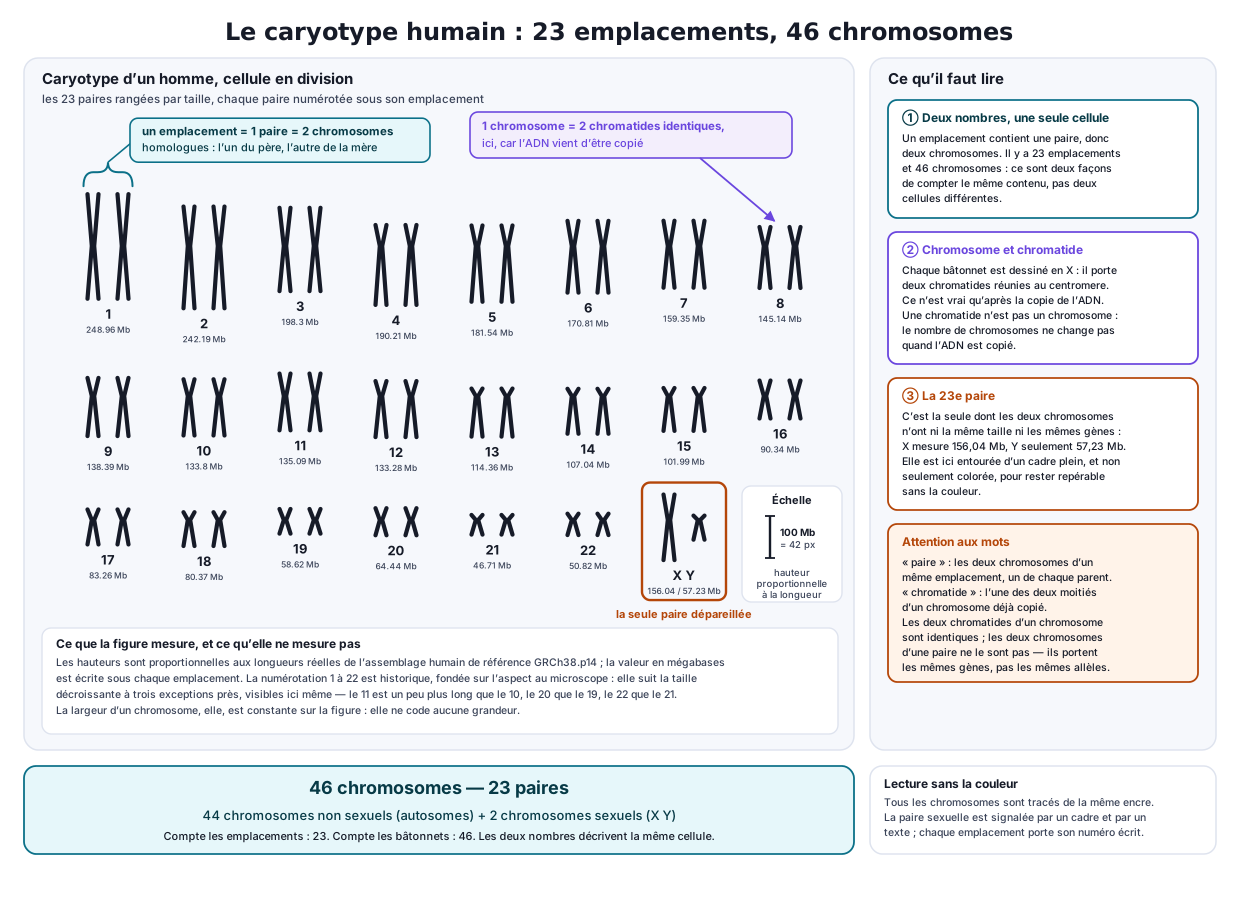
Phases G1, S, G2, M ; réplication en phase S ; mitose (prophase, métaphase, anaphase, télophase) ; conservation du caryotype ; chromosomes à une ou deux chromatides.
Chapitre : Transmission, variation et expression du patrimoine génétique
Prérequis : Organisation de la cellule eucaryote, Structure de l'ADN
Erreurs typiques (3)
Croire que la quantité d'ADN est doublée pendant la mitose (elle l'est pendant la phase S).
Confondre chromatides et chromosomes homologues.
Penser que la mitose produit des cellules génétiquement différentes.
Source : BO spécial n°1 du 22 janvier 2019 — programme de spécialité sciences de la vie et de la Terre de première générale
Enzymes, biocatalyseurs
Difficulté 3 sur 5
Spécificité de substrat et d'action, site actif, complexe enzyme-substrat, influence de la température et du pH, vitesse initiale en fonction de la concentration en substrat.
Chapitre : Transmission, variation et expression du patrimoine génétique
Les enzymes, des biomolécules aux propriétés catalytiques
Prérequis : Expression génétique : transcription et traduction
Erreurs typiques (3)
Croire que l'enzyme est consommée par la réaction.
Penser que la vitesse augmente indéfiniment avec la concentration en substrat (saturation).
Confondre dénaturation (irréversible, forte chaleur) et simple ralentissement au froid.
Source : BO spécial n°1 du 22 janvier 2019 — programme de spécialité sciences de la vie et de la Terre de première générale
Expression génétique : transcription et traduction
Difficulté 3 sur 5
Du gène à la protéine : transcription en ARN messager, code génétique (codons, redondance, universalité), traduction par le ribosome, relation génotype-phénotype.
Chapitre : Transmission, variation et expression du patrimoine génétique
Prérequis : Écosystèmes et réseaux trophiques, Combustions, Effet de serre et bilan radiatif
Erreurs typiques (3)
Croire que les combustibles fossiles se renouvellent à l'échelle humaine.
Confondre stock (réservoir) et flux.
Penser que les océans n'absorbent pas de CO₂.
Source : BO spécial n°8 du 25 juillet 2019 — programme d'enseignement scientifique de terminale générale
Analyse d'arbres généalogiques
Difficulté 3 sur 5
Déterminer le mode de transmission d'un caractère (dominant/récessif, autosomique/lié à l'X) et les génotypes possibles ; probabilité pour un enfant à naître.
Chapitre : Génétique et évolution
Transmission des maladies génétiques
Prérequis : Croisement monohybride
Erreurs typiques (3)
Conclure « dominant » parce que le caractère apparaît à chaque génération, sans argument d'exclusion.
Ignorer qu'un caractère récessif peut sauter une génération via des porteurs sains.
Oublier que pour un gène lié à l'X, un garçon reçoit l'X de sa mère.
Source : BO spécial n°8 du 25 juillet 2019 — programme de spécialité sciences de la vie et de la Terre de terminale générale
Contraction musculaire et énergie
Difficulté 3 sur 5
Structure de la fibre musculaire, sarcomère, glissement actine-myosine, rôle de l'ATP et du calcium, voies de régénération de l'ATP (phosphocréatine, fermentation, respiration).
Chapitre : Corps humain et santé
Produire le mouvement : contraction musculaire et apport d'énergie
Prérequis : Respiration cellulaire et ATP, Potentiel d'action et transmission synaptique
Erreurs typiques (3)
Croire que les filaments se raccourcissent (ils glissent les uns sur les autres).
Penser que l'ATP sert au relâchement seulement ou à la contraction seulement (il sert aux deux).
Confondre fatigue musculaire et épuisement total de l'ATP.
Source : BO spécial n°8 du 25 juillet 2019 — programme de spécialité sciences de la vie et de la Terre de terminale générale
Croisement monohybride
Difficulté 3 sur 5
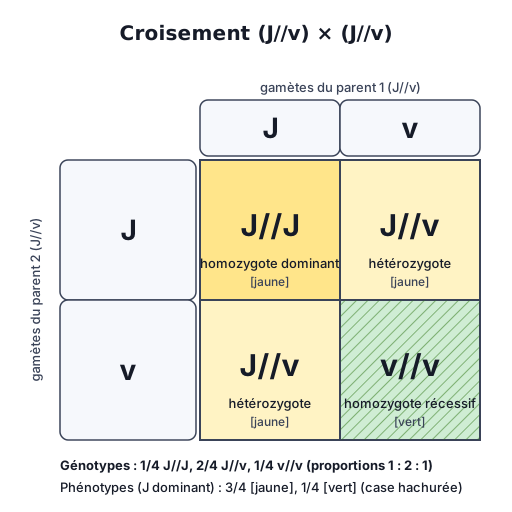
Lois de Mendel pour un gène : allèles, génotype et phénotype, échiquier de croisement, proportions 3:1 (F2 phénotypes) et 1:2:1 (génotypes), test-cross.
Prérequis : Gènes et allèles, Méiose et brassages génétiques, Probabilités élémentaires
Erreurs typiques (4)
Attendre exactement 3:1 sur un petit effectif (ce sont des probabilités, pas des quotas).
Confondre proportions phénotypiques (3:1) et génotypiques (1:2:1).
Écrire les gamètes d'un hétérozygote comme « Aa » au lieu de A ou a.
Déduire le génotype d'un individu de phénotype dominant sans test-cross.
Source : BO spécial n°8 du 25 juillet 2019 — programme de spécialité sciences de la vie et de la Terre de terminale générale
Espèce et spéciation
Difficulté 3 sur 5
Définition biologique de l'espèce (interfécondité), isolement reproducteur, spéciation allopatrique et sympatrique, hybridation.
Chapitre : Génétique et évolution
D'autres mécanismes contribuent à la diversité du vivant
Prérequis : Sélection naturelle, Dérive génétique
Erreurs typiques (3)
Considérer l'espèce comme une catégorie figée et parfaitement délimitée.
Croire qu'une barrière géographique suffit immédiatement à créer deux espèces.
Confondre hybride fertile et hybride stérile (mulet).
Source : BO spécial n°8 du 25 juillet 2019 — programme de spécialité sciences de la vie et de la Terre de terminale générale
Évolution de la lignée humaine
Difficulté 3 sur 5
Place de l'humain parmi les primates, caractères dérivés (bipédie, volume crânien), genre Homo, buissonnement de la lignée, métissages avec Néandertal.
Chapitre : Génétique et évolution
L'évolution humaine
Prérequis : Arbres phylogénétiques et parenté, Espèce et spéciation
Erreurs typiques (3)
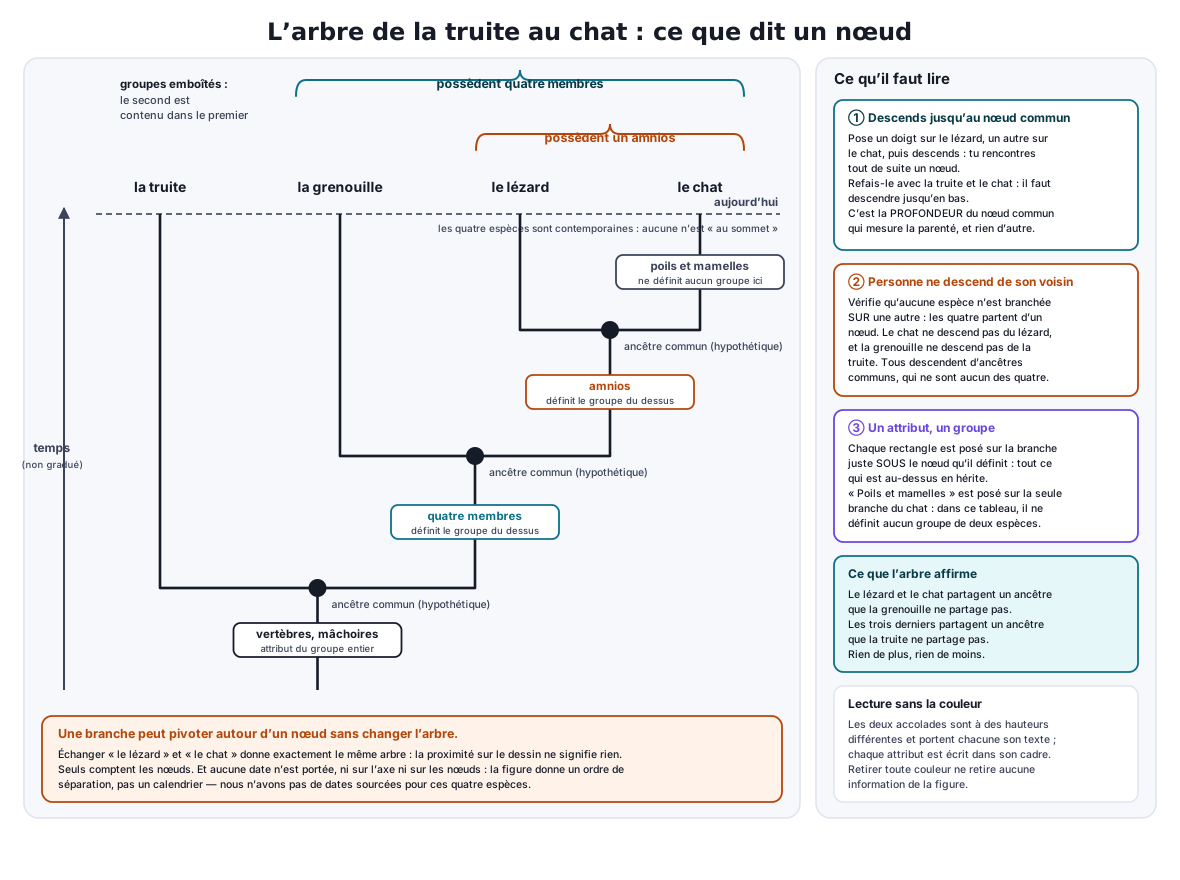
Affirmer que l'humain descend du chimpanzé (ils partagent un ancêtre commun).
Représenter l'évolution humaine comme une ligne droite.
Croire que Néandertal est un ancêtre direct d'Homo sapiens.
Source : BO spécial n°8 du 25 juillet 2019 — programme de spécialité sciences de la vie et de la Terre de terminale générale
Méiose et brassages génétiques
Difficulté 3 sur 5
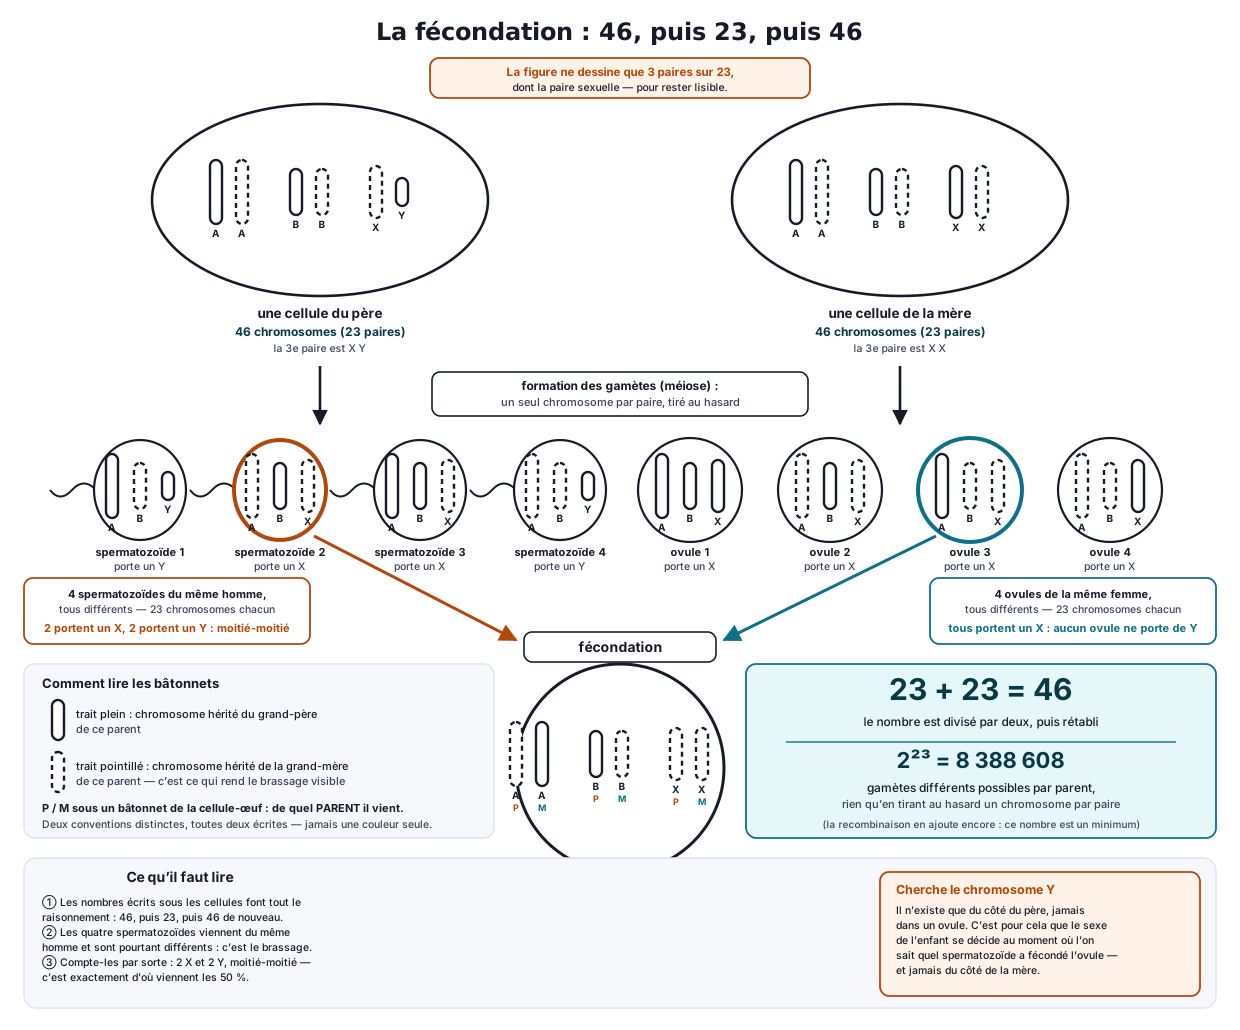
Deux divisions successives, réduction du nombre de chromosomes, brassage interchromosomique (répartition aléatoire) et intrachromosomique (crossing-over), anomalies.
Prérequis : Cycle cellulaire et mitose, Reproduction sexuée et transmission des chromosomes
Erreurs typiques (3)
Confondre la séparation des homologues (méiose I) et des chromatides (méiose II).
Penser que le crossing-over a lieu entre chromatides sœurs.
Croire que la méiose produit deux cellules (elle en produit quatre).
Source : BO spécial n°8 du 25 juillet 2019 — programme de spécialité sciences de la vie et de la Terre de terminale générale
Photosynthèse
Difficulté 3 sur 5
Phase photochimique (capture de l'énergie lumineuse, production d'O₂) et phase chimique (fixation du CO₂, cycle de Calvin) ; bilan 6 CO₂ + 6 H₂O → C₆H₁₂O₆ + 6 O₂ ; rôle des chloroplastes.
Chapitre : Enjeux contemporains de la planète
De la plante sauvage à la plante domestiquée : photosynthèse
Prérequis : Organisation de la cellule eucaryote, Transformation chimique et équation de réaction
Erreurs typiques (3)
Croire que les plantes ne respirent pas (elles respirent jour et nuit).
Penser que l'O₂ libéré provient du CO₂ (il provient de l'eau).
Affirmer que la plante « se nourrit » du sol.
Source : BO spécial n°8 du 25 juillet 2019 — programme de spécialité sciences de la vie et de la Terre de terminale générale
Potentiel d'action et transmission synaptique
Difficulté 3 sur 5
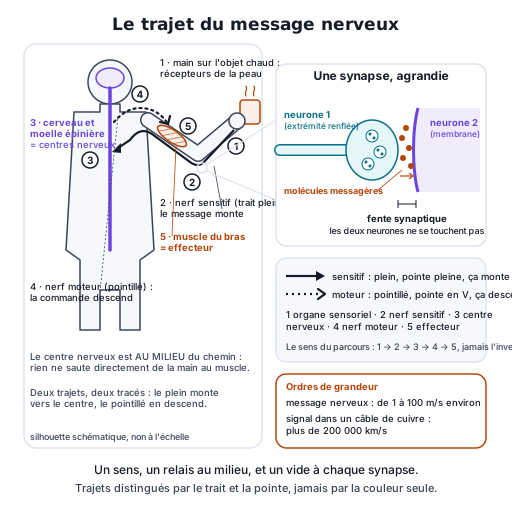
Potentiel de repos, potentiel d'action (loi du tout ou rien, codage en fréquence), propagation, synapse chimique et neurotransmetteurs, réflexe myotatique.
Chapitre : Corps humain et santé
Comportements, mouvement et système nerveux : le réflexe myotatique
Prérequis : Croisement monohybride, Probabilités conditionnelles et indépendance
Erreurs typiques (3)
Appliquer 9:3:3:1 à un test-cross (qui donne 1:1:1:1 si les gènes sont indépendants).
Interpréter des proportions inégales comme une erreur expérimentale plutôt que comme un signe de liaison.
Oublier que les gamètes recombinés sont minoritaires pour des gènes liés.
Source : BO spécial n°8 du 25 juillet 2019 — programme de spécialité sciences de la vie et de la Terre de terminale générale
Équilibre de Hardy-Weinberg
Difficulté 4 sur 5
Fréquences alléliques p et q, fréquences génotypiques p², 2pq, q² sous hypothèse d'équilibre, conditions du modèle, écart à l'équilibre comme indice d'évolution.
Chapitre : Génétique et évolution
L'inéluctable évolution des génomes au sein des populations
Confondre fréquence allélique et fréquence génotypique.
Estimer q comme la fréquence des malades au lieu de √(fréquence des homozygotes récessifs).
Croire que le modèle s'applique à une population réelle sans vérifier ses hypothèses.
Source : BO spécial n°8 du 25 juillet 2019 — programme de spécialité sciences de la vie et de la Terre de terminale générale
Prépa 1re année — 2 compétences · 0 avec exercice
Cartes factorielles et distances génétiques
Difficulté 4 sur 5
Fréquence de recombinaison mesurée sur la descendance d'un croisement-test, distance génétique en centimorgans, ordre de trois gènes déduit des doubles recombinants, additivité approchée des distances, saturation à 50 % pour des gènes éloignés ou portés par des chromosomes différents, interférence.
Chapitre : Génétique formelle
Cartes factorielles et liaison génétique
Prérequis : Croisement dihybride, gènes liés et indépendants, Méiose et brassages génétiques
Erreurs typiques (5)
Compter les descendants parentaux au lieu des recombinés au numérateur de la fréquence de recombinaison.
Lire une fréquence de recombinaison de 50 % comme une liaison lâche, alors qu'elle est indiscernable d'une indépendance.
Déduire l'ordre des trois gènes des classes les plus nombreuses au lieu des doubles recombinants, qui sont les plus rares.
Additionner les distances de deux intervalles voisins sans voir que les doubles recombinants sont comptés deux fois en moins.
Confondre distance génétique, exprimée en centimorgans, et distance physique, exprimée en paires de bases.
Source : BO spécial n°1 du 11 février 2021 — programme de BCPST 1re année (SVT et mathématiques)
Chaîne respiratoire et couplage chimiosmotique
Difficulté 4 sur 5
Réoxydation des coenzymes réduits par les complexes de la membrane interne mitochondriale, transfert d'électrons du couple le plus réducteur vers le dioxygène, pompage de protons et gradient électrochimique, force proton-motrice (composantes électrique et chimique), synthèse d'ATP par l'ATP synthase, effet d'un découplant.
Chapitre : Le métabolisme cellulaire
Oxydations phosphorylantes et couplage chimiosmotique
Prérequis : Respiration cellulaire et ATP, Oxydants, réducteurs et réactions d'oxydoréduction
Erreurs typiques (4)
Croire que les électrons issus des coenzymes réduits parviennent directement à l'ATP synthase, alors que le seul lien entre la chaîne et l'enzyme est le gradient de protons.
Placer les protons pompés dans la matrice au lieu de l'espace intermembranaire, ce qui inverse le sens du retour par l'ATP synthase.
Confondre le gradient de concentration en protons et la différence de potentiel de membrane : la force proton-motrice est la somme des deux.
Penser qu'un découplant bloque la chaîne respiratoire, alors qu'il l'accélère en dissipant le gradient, la consommation de dioxygène augmentant sans synthèse d'ATP.
Source : BO spécial n°1 du 11 février 2021 — programme de BCPST 1re année (SVT et mathématiques)
Prépa 2e année — 5 compétences · 0 avec exercice
Flux d'énergie et productivité des écosystèmes
Difficulté 4 sur 5
Devenir de l'énergie lumineuse incidente : fraction effectivement convertie par les producteurs primaires, productivité primaire brute, part consommée par leur propre respiration, productivité primaire nette réellement disponible pour les niveaux suivants. Productivité secondaire, rendement d'assimilation et rendement de production chez un consommateur, efficacité écologique du passage d'un niveau trophique au suivant. Pyramides d'énergie, de biomasse et d'effectifs, et pourquoi seule la pyramide d'énergie ne peut jamais être inversée. Conséquence sur le nombre de niveaux trophiques qu'un écosystème peut porter, et sur le coût énergétique d'un régime alimentaire.
Chapitre : Écologie : structure et fonctionnement des écosystèmes
Flux d'énergie, productivité et rendements écologiques
Prérequis : Écosystèmes et réseaux trophiques, Cycle du carbone, Photosynthèse, Respiration cellulaire et ATP
Erreurs typiques (5)
Confondre productivité primaire brute et nette : la nette est ce qui reste une fois la respiration des producteurs déduite.
Confondre productivité (un flux, par unité de temps) et biomasse (un stock).
Croire qu'une pyramide de biomasse inversée est impossible : elle est courante en milieu marin, où un très petit stock de phytoplancton se renouvelle très vite.
Prendre le rendement écologique comme une constante universelle : la valeur souvent citée est un ordre de grandeur, pas une loi.
Oublier les décomposeurs, qui reçoivent une part importante de la production nette sans figurer dans la chaîne de consommation.
Source : Programme officiel de sciences de la vie et de la Terre de la classe préparatoire BCPST, deuxième année
Fonction rénale et clairance
Difficulté 4 sur 5
Le néphron comme unité fonctionnelle : filtration glomérulaire, réabsorption et sécrétion tubulaires, concentration de l'urine dans l'anse. Clairance rénale d'une substance, définie comme le volume de plasma totalement épuré de cette substance par unité de temps, et calculée à partir de sa concentration urinaire, du débit urinaire et de sa concentration plasmatique. Mesure du débit de filtration glomérulaire par une substance librement filtrée, ni réabsorbée ni sécrétée ; comparaison de la clairance d'une substance quelconque à ce débit pour conclure à une réabsorption nette ou à une sécrétion nette. Place du rein dans le bilan hydrominéral et dans la régulation de la pression artérielle.
Chapitre : Physiologie animale : l'organisme en fonctionnement intégré
Bilan hydrominéral, fonction rénale et clairance
Prérequis : Circulation sanguine, Régulation de la glycémie, Communication hormonale
Erreurs typiques (5)
Confondre la clairance et le débit urinaire : la clairance est un volume de PLASMA épuré, jamais un volume d'urine émise.
Croire qu'une substance entièrement réabsorbée a une clairance élevée : elle a au contraire une clairance quasi nulle.
Conclure à une sécrétion tubulaire quand la clairance est INFÉRIEURE au débit de filtration glomérulaire (c'est l'inverse : réabsorption nette).
Oublier de ramener le débit urinaire et les concentrations aux mêmes unités de temps et de volume avant de faire le quotient.
Prendre la concentration urinaire pour une quantité : une urine très concentrée peut correspondre à une faible quantité excrétée si le débit urinaire est faible.
Source : Programme officiel de sciences de la vie et de la Terre de la classe préparatoire BCPST, deuxième année
Potentiel hydrique et circulation de la sève brute
Difficulté 4 sur 5
Potentiel hydrique d'un compartiment, somme d'un terme osmotique (négatif, d'autant plus que la solution est concentrée) et d'un terme de pression. L'eau passe toujours du potentiel hydrique le plus élevé vers le plus bas : ce critère unique remplace les raisonnements en « concentrations » du lycée. Continuum sol - plante - atmosphère, gradient de potentiel qui l'entretient, théorie de la tension-cohésion dans le xylème, rôle de la transpiration stomatique et compromis entre entrée de dioxyde de carbone et perte d'eau. Turgescence, plasmolyse et plasmolyse incipiente comme lecture expérimentale du potentiel osmotique.
Chapitre : Physiologie végétale : la plante et son milieu
Potentiel hydrique, nutrition hydrique et circulation de la sève brute
Prérequis : Organisation de la cellule eucaryote, Photosynthèse, Concentration en quantité de matière et dilution, Pression et statique des fluides
Erreurs typiques (5)
Écrire un potentiel osmotique positif : le terme osmotique est toujours négatif ou nul, c'est l'eau pure qui vaut zéro.
Faire circuler l'eau « vers le plus concentré » sans tenir compte du terme de pression, qui peut inverser le sens du transfert.
Croire que la sève brute est poussée par la racine sur toute la hauteur : la poussée racinaire ne suffit pas, c'est la tension due à la transpiration qui tire la colonne.
Confondre sève brute (xylème, eau et ions) et sève élaborée (phloème, produits de la photosynthèse).
Penser que fermer les stomates est toujours bénéfique : la plante ferme alors aussi la porte au dioxyde de carbone et arrête sa photosynthèse.
Source : Programme officiel de sciences de la vie et de la Terre de la classe préparatoire BCPST, deuxième année
Présentation antigénique et restriction par le CMH
Difficulté 4 sur 5
Molécules du complexe majeur d'histocompatibilité de classe I, présentes sur toutes les cellules nucléées et lues par les lymphocytes T cytotoxiques, et de classe II, portées par les cellules présentatrices et lues par les lymphocytes T auxiliaires. Apprêtement cytosolique et apprêtement endosomal des antigènes. Double reconnaissance : le récepteur T ne reconnaît jamais un antigène libre, mais un peptide présenté par une molécule du soi — c'est la restriction. Sélection clonale, origine de la diversité des récepteurs par recombinaison somatique des segments géniques, polymorphisme du CMH et conséquence sur la compatibilité des greffes.
Chapitre : Immunologie : la réponse immunitaire adaptative
Présentation antigénique, restriction par le CMH et sélection clonale
Croire que le lymphocyte T reconnaît l'antigène libre, comme le fait un anticorps : il ne reconnaît qu'un peptide présenté par une molécule du CMH.
Intervertir les deux classes : le CMH de classe I s'adresse aux lymphocytes T cytotoxiques, celui de classe II aux lymphocytes T auxiliaires.
Attribuer la diversité des récepteurs à des mutations subies par l'individu : elle vient d'un réarrangement de segments géniques dans chaque lymphocyte au cours de sa maturation.
Dire que le CMH est « l'antigène du greffon » : ce sont les molécules du soi du donneur, reconnues comme étrangères par le receveur.
Croire que la sélection clonale fabrique un récepteur adapté à l'antigène : le répertoire préexiste, l'antigène ne fait qu'y sélectionner puis amplifier un clone.
Source : Programme officiel de sciences de la vie et de la Terre de la classe préparatoire BCPST, deuxième année
Dynamique d'un allèle sous sélection
Difficulté 5 sur 5
Valeur sélective relative des trois génotypes d'un locus à deux allèles et coefficient de sélection qui en découle. Passage d'une génération à la suivante : à partir des fréquences génotypiques et des valeurs sélectives, on calcule la fréquence allélique de la génération suivante, puis on itère. Sélection directionnelle et disparition lente d'un allèle récessif rare ; équilibre stable et polymorphisme maintenu quand l'hétérozygote est le plus avantagé. Comparaison des ordres de grandeur : la dérive l'emporte sur la sélection quand le produit de l'effectif efficace par le coefficient de sélection est petit devant un. L'écart à la proportion de Hardy-Weinberg est un CONSTAT ; la sélection en est une cause possible parmi d'autres.
Chapitre : Évolution : mécanismes et dynamique des populations
Sélection, dérive et dynamique des fréquences alléliques
Prérequis : Équilibre de Hardy-Weinberg, Sélection naturelle, Dérive génétique, Suites arithmétiques et géométriques
Erreurs typiques (6)
Croire qu'un allèle défavorable disparaît en quelques générations : quand il est rare et récessif, il est presque toujours caché à l'état hétérozygote, et son élimination devient extrêmement lente.
Confondre valeur sélective et fréquence : la valeur sélective décrit un génotype, la fréquence décrit sa part dans la population.
Appliquer la relation de Hardy-Weinberg à la génération suivante sans corriger par les valeurs sélectives, alors que la sélection vient précisément de la rompre.
Croire que la sélection ne peut qu'éliminer un allèle : l'avantage de l'hétérozygote maintient au contraire les deux allèles à un équilibre stable.
Oublier de diviser par la valeur sélective moyenne de la population, et obtenir des fréquences dont la somme ne vaut pas un.
Traiter la dérive et la sélection comme exclusives, alors que leur importance relative dépend de l'effectif de la population.
Source : Programme officiel de sciences de la vie et de la Terre de la classe préparatoire BCPST, deuxième année
Licence 1 — 10 compétences · 1 avec exercice
Organisation du corps humain et vocabulaire anatomique de position
Difficulté 2 sur 5
Poser le langage descriptif sans lequel aucun énoncé d'anatomie n'est lisible. Tout se décrit par rapport à une POSITION ANATOMIQUE DE RÉFÉRENCE conventionnelle — sujet debout, regard à l'horizontale, membres supérieurs le long du corps, paumes vers l'avant — de sorte qu'une description reste valable quelle que soit la posture réelle. Trois plans orthogonaux découpent l'espace : le plan sagittal, vertical et orienté d'avant en arrière, dont le plan médian passe par le milieu du corps ; le plan frontal, vertical et parallèle au front ; le plan transversal, horizontal. Les termes de position vont par paires opposées et se lisent toujours dans ce référentiel : supérieur et inférieur, antérieur et postérieur, médial et latéral, superficiel et profond, et, pour les membres seulement, proximal et distal, définis par rapport à la racine du membre. L'organisation est emboîtée : cellules, tissus, organes, systèmes, organisme, chaque niveau ayant des propriétés que le précédent n'a pas. Les cavités se distinguent de la même façon : cavité crânienne et canal vertébral en arrière, cavités thoracique et abdomino-pelvienne en avant, séparées par le diaphragme. Compétence de VOCABULAIRE et de REPÉRAGE : elle décrit, elle ne diagnostique rien.
Chapitre : Anatomie générale
Vocabulaire anatomique et niveaux d'organisation
Prérequis : La cellule, unité du vivant, Circulation sanguine, Respiration et échanges gazeux
Erreurs typiques (7)
Décrire une position d'après la posture du sujet observé au lieu de la position anatomique de référence, ce qui inverse antérieur et postérieur dès que le sujet est couché.
Confondre le plan sagittal, vertical et orienté d'avant en arrière, et le plan frontal, vertical et parallèle au front.
Employer proximal et distal ailleurs que sur un membre, alors que ces termes se définissent par rapport à la racine du membre.
Confondre médial, qui rapproche du plan médian, et médian, qui désigne ce plan lui-même.
Utiliser « au-dessus » ou « en dessous » sans préciser le référentiel, alors que supérieur et inférieur sont définis dans la position de référence.
Confondre les niveaux d’organisation, en appelant « organe » un tissu ou « système » un organe.
Croire que la cavité abdominale et la cavité pelvienne sont séparées par une cloison : elles communiquent et forment une seule cavité abdomino-pelvienne.
Source : E. Marieb, K. Hoehn, Anatomie et physiologie humaines, Pearson
Acides aminés : ionisation, zwitterion et point isoélectrique
Difficulté 3 sur 5
Un acide aminé n'est jamais neutre au sens de « sans charge » : en solution il porte à la fois un groupe alpha-carboxyle et un groupe alpha-aminé, chacun avec son propre pKa, et sa forme majoritaire dépend du pH. Savoir faire : classer les pKa par valeur croissante et en déduire la suite des formes ioniques successives, de la plus protonée à la plus déprotonée ; nommer le zwitterion, forme de charge nette nulle qui porte pourtant deux charges opposées ; calculer le point isoélectrique comme la demi-somme des deux pKa qui ENCADRENT la forme de charge nette nulle — les deux plus petits pour une chaîne latérale acide, les deux plus grands pour une chaîne latérale basique, les deux seuls disponibles quand la chaîne latérale ne s'ionise pas ; appliquer la relation de Henderson-Hasselbalch pour obtenir le pH d'un mélange des deux formes d'un même groupe, ou le rapport de leurs concentrations à un pH donné. Conséquences à savoir lire : sous le point isoélectrique la molécule est globalement chargée positivement et migre vers la cathode en électrophorèse, au-dessus c'est l'inverse ; le pouvoir tampon d'un groupe est maximal au voisinage de son pKa, ce qui explique que l'imidazole de l'histidine, dont le pKa avoisine 6, tamponne dans la gamme physiologique alors que le groupe alpha-carboxyle, dont le pKa avoisine 2, n'y tamponne pas.
Prérequis : Couples acide-base de Brønsted, pH, acides forts et faibles, constante d'acidité, Groupes caractéristiques et nomenclature, Fonction logarithme népérien
Erreurs typiques (7)
Moyenner TOUS les pKa de la molécule au lieu des deux seuls qui encadrent la forme de charge nette nulle : pour un acide aminé à trois groupes ionisables, le point isoélectrique n'est jamais la moyenne des trois.
Prendre les deux pKa dans l'ordre où l'énoncé les écrit au lieu de les trier par valeur croissante : la suite des formes ioniques suit les pKa croissants, pas le nom des groupes.
Croire que la forme de charge nette nulle est une forme sans charge : le zwitterion porte un carboxylate négatif ET un ammonium positif, qui se compensent exactement.
Inverser le sens de la charge de part et d’autre du point isoélectrique : au-dessous du pHi la molécule est chargée POSITIVEMENT, parce qu’un pH plus acide protone davantage.
Inverser le rapport base sur acide dans la relation de Henderson-Hasselbalch, ce qui change le signe du terme logarithmique et place le pH du mauvais côté du pKa.
Confondre le pKa d’un groupe alpha-carboxyle porté par un acide aminé, voisin de 2, avec celui d’un acide carboxylique isolé, voisin de 4,8 : c’est la proximité de l’ammonium qui abaisse le premier.
Traiter une chaîne latérale non ionisable comme si elle avait un pKa, et fabriquer ainsi un troisième équilibre inexistant.
Source : D. Nelson, M. Cox, Principes de biochimie de Lehninger, De Boeck
Cytosquelette et moteurs moléculaires
Difficulté 3 sur 5
Comprendre comment une cellule tient sa forme et déplace son contenu. Trois familles de filaments protéiques, de diamètres et de rôles distincts : les microfilaments d'actine, fins et concentrés sous la membrane, portent les déformations de surface et la migration ; les microtubules, creux et rigides, rayonnent depuis le centrosome et servent de rails au transport puis de fuseau lors de la division ; les filaments intermédiaires, les plus stables, assurent la résistance mécanique. Les deux premières familles sont POLARISÉES et dynamiques : leurs sous-unités s'ajoutent préférentiellement à une extrémité et se détachent à l'autre, si bien qu'un filament peut s'allonger, raccourcir ou se maintenir en flux continu, aux dépens d'une hydrolyse de nucléotide. Cette polarité donne un sens de déplacement aux moteurs moléculaires qui s'y accrochent : sur les microtubules, les kinésines vont majoritairement vers l'extrémité périphérique et les dynéines vers l'extrémité centrale, ce qui suffit à expliquer que les deux transportent des cargaisons en sens opposés le long du même rail ; sur l'actine, ce rôle revient aux myosines. Chaque pas d'un moteur consomme l'énergie fournie par l'hydrolyse de l'ATP : rien ne se déplace ici par simple diffusion orientée.
Chapitre : Biologie cellulaire
Cytosquelette et mouvements cellulaires
Prérequis : Organisation de la cellule eucaryote, Cycle cellulaire et mitose, Contraction musculaire et énergie, Structure des protéines : quatre niveaux et les liaisons qui les tiennent
Erreurs typiques (6)
Se représenter le cytosquelette comme une charpente figée alors que ses filaments s’assemblent et se désassemblent en permanence.
Confondre microfilament d'actine et microtubule, et leur attribuer les rôles inverses dans la division cellulaire.
Croire que kinésines et dynéines circulent dans le même sens sur un microtubule : c’est la polarité du filament qui leur donne des sens opposés.
Oublier que chaque pas d'un moteur consomme de l'ATP, et décrire le transport intracellulaire comme une simple diffusion.
Attribuer une polarité aux filaments intermédiaires, qui n’en ont pas, et donc leur chercher des moteurs associés.
Confondre le déplacement du moteur le long du filament et le raccourcissement du filament lui-même : ce sont deux mécanismes distincts.
Source : B. Alberts et al., Biologie moléculaire de la cellule, Lavoisier
Échanges membranaires : diffusion et osmose
Difficulté 3 sur 5
Perméabilité sélective, diffusion simple et facilitée, osmose, transport actif, gradient de concentration, hémolyse et plasmolyse.
Prérequis : Organisation de la cellule eucaryote, Concentration en masse
Erreurs typiques (3)
Inverser le sens de l'osmose (l'eau va vers le compartiment le plus concentré en soluté).
Croire que la diffusion nécessite de l'énergie.
Confondre concentration en soluté et concentration en eau.
Source : N. Campbell, J. Reece et al., Biologie, Pearson
Glucides : oses, cyclisation, anomérie et liaison osidique
Difficulté 3 sur 5
Lire et écrire la structure d'un glucide. Un ose est un polyalcool portant une fonction carbonyle, aldéhyde pour un aldose, cétone pour un cétose, et se nomme d'après son nombre d'atomes de carbone. En solution aqueuse la forme ouverte est minoritaire : le carbonyle réagit avec un hydroxyle de la même molécule et referme un cycle, ce qui crée un carbone asymétrique SUPPLÉMENTAIRE, le carbone anomérique, d'où deux formes cycliques alpha et bêta qui s'interconvertissent en repassant par la forme ouverte. Ne pas confondre cette anomérie avec la série D ou L, qui se lit sur le carbone asymétrique le plus éloigné du carbonyle et ne change pas en solution. La liaison osidique unit le carbone anomérique d'un ose à un hydroxyle d'une autre molécule, avec départ d'eau ; sa géométrie, alpha ou bêta, et les numéros des carbones engagés suffisent à distinguer des polymères aux propriétés opposées : l'amidon et la cellulose sont tous deux des polymères de glucose, mais les liaisons alpha du premier donnent une chaîne hélicoïdale que les enzymes humaines coupent, tandis que les liaisons bêta de la seconde donnent des chaînes linéaires associées en fibres que ces mêmes enzymes n'attaquent pas. Un ose dont le carbone anomérique reste libre est réducteur ; engagé dans une liaison osidique, il ne l'est plus.
Chapitre : Biochimie
Glucides
Prérequis : Groupes caractéristiques et nomenclature, Dissolution et solubilité, Digestion et nutriments
Erreurs typiques (7)
Confondre l'anomérie alpha ou bêta, qui porte sur le carbone anomérique créé par la cyclisation, et la série D ou L, qui se lit sur le carbone asymétrique le plus éloigné du carbonyle.
Croire que l'amidon et la cellulose diffèrent par leur ose : les deux sont des polymères de glucose, c'est la géométrie de la liaison osidique qui change tout.
Oublier que la cyclisation crée un carbone asymétrique de plus, et donc compter un stéréoisomère de moins qu’il n’y en a.
Croire qu'un « sucre réducteur » réduit d'autres molécules par hasard : c'est sa fonction carbonyle libre, disponible parce que le carbone anomérique n'est pas engagé, qui est oxydable.
Écrire une liaison osidique sans préciser les numéros des carbones engagés ni sa géométrie, ce qui ne désigne aucune molécule précise.
Croire que les formes alpha et bêta d’un ose en solution sont deux composés séparés : elles s’interconvertissent en repassant par la forme ouverte.
Traiter le glycogène et l'amidon comme identiques alors qu'ils diffèrent par la fréquence de leurs ramifications.
Source : D. Nelson, M. Cox, Principes de biochimie de Lehninger, De Boeck
Lipides : classes, amphiphilie et auto-assemblage en bicouche
Difficulté 3 sur 5
Comprendre pourquoi une membrane se forme toute seule. Les lipides sont définis par une propriété physique, la faible solubilité dans l'eau, et non par une fonction chimique commune : le groupe rassemble acides gras, triglycérides, phospholipides et stérols. Un acide gras se décrit par la longueur de sa chaîne et par son nombre d'insaturations, dont chacune introduit un coude qui gêne l'empilement des chaînes voisines et abaisse la température de fusion : c'est pourquoi une huile riche en insaturations est liquide là où une graisse saturée est solide. Un phospholipide est AMPHIPHILE : une tête polaire et deux chaînes apolaires sur la même molécule. Placé dans l'eau il s'organise spontanément — non parce que ses chaînes s'attirent, mais parce que l'eau récupère de l'entropie en cessant de s'ordonner autour d'elles — et forme une bicouche dont les têtes bordent les deux faces aqueuses et dont le cœur hydrophobe est le vrai obstacle au passage des ions et des molécules polaires. La géométrie de la molécule décide de l'assemblage : une tête large sur une seule chaîne donne une micelle, une tête et deux chaînes de sections comparables donnent une bicouche. Le cholestérol, court et rigide, s'intercale entre les chaînes et module la fluidité dans les deux sens selon la température.
Chapitre : Biochimie
Lipides et membranes biologiques
Prérequis : Cohésion de la matière et interactions intermoléculaires, Géométrie et polarité des molécules, Échanges membranaires : diffusion et osmose, Groupes caractéristiques et nomenclature
Erreurs typiques (7)
Croire que la bicouche est tenue par des liaisons covalentes entre lipides : aucune liaison chimique n'unit deux phospholipides voisins, l'assemblage est physique et réversible.
Parler d'une « attraction hydrophobe » entre les chaînes apolaires alors que le moteur de l'assemblage est le gain d'entropie de l'eau qui cesse de s'ordonner autour d'elles.
Confondre l'effet de la longueur de chaîne et celui des insaturations sur la fluidité, ou croire qu'une seule insaturation ne change presque rien.
Réduire les lipides à une réserve d'énergie et oublier leurs rôles de structure et de signalisation.
Croire que le cholestérol rend toujours la membrane plus rigide : il s’oppose aux deux extrêmes, gênant l’empilement à basse température et le limitant à haute température.
Définir les lipides par une fonction chimique commune alors que la définition du groupe est une propriété de solubilité.
Croire que le cœur hydrophobe arrête toutes les molécules : les espèces petites et apolaires le traversent librement, ce sont les ions et les molécules polaires qui sont bloqués.
Source : B. Alberts et al., Biologie moléculaire de la cellule, Lavoisier
PCR : amplification exponentielle d'une séquence choisie
Difficulté 3 sur 5
Reproduire la réplication de l'ADN in vitro, mais sur une région choisie. Un cycle enchaîne trois températures : dénaturation, qui sépare les deux brins ; hybridation, où deux amorces courtes se fixent chacune sur un brin en encadrant la région d'intérêt ; élongation, où une ADN polymérase thermostable synthétise le brin complémentaire à partir de chaque amorce. Ce sont les AMORCES, et elles seules, qui choisissent la région amplifiée : le reste du génome est présent mais n'est pas recopié de façon exploitable. Le nombre de copies double à chaque cycle tant que les réactifs sont en excès, d'où une croissance géométrique de raison 2 ; il faut cependant trois cycles pour que la première molécule de longueur exactement définie par les deux amorces apparaisse, les produits des premiers cycles ayant une extrémité libre. La croissance finit par s'infléchir puis atteindre un plateau, quand les amorces ou les nucléotides s'épuisent et que les produits se réhybrident entre eux plus vite que les amorces ne les trouvent : conclure sur une quantité initiale à partir du produit final d'une PCR classique est donc un contresens. La température d'hybridation se choisit à partir de la température de fusion des amorces : trop basse, elles se fixent sur des sites approximatifs et l'on amplifie autre chose ; trop haute, elles ne se fixent plus du tout.
Prérequis : Structure de l'ADN, Réplication de l'ADN, Suites arithmétiques et géométriques
Erreurs typiques (7)
Croire que la PCR amplifie tout l'ADN présent : seules les régions encadrées par les deux amorces sont recopiées de façon exploitable.
Oublier qu'il faut trois cycles avant qu'apparaisse la première molécule de longueur exactement définie par les deux amorces, et donc surestimer le nombre de fragments de bonne taille aux premiers cycles.
Prolonger la croissance géométrique jusqu'au dernier cycle alors que la réaction atteint un plateau dès que les amorces ou les nucléotides s'épuisent.
Confondre amorce, qui est allongée par la polymérase, et sonde, qui sert seulement à révéler une séquence.
Croire qu'une température d'hybridation plus basse est toujours plus sûre : elle autorise des appariements approximatifs et amplifie des régions non voulues.
Oublier que la polymérase employée doit être thermostable, faute de quoi elle serait détruite dès la première dénaturation.
Déduire la quantité d'ADN de départ de la quantité de produit obtenue en fin de PCR classique, alors que le plateau efface justement cette information.
Source : K. Mullis, F. Faloona, « Specific synthesis of DNA in vitro via a polymerase-catalyzed chain reaction », Methods in Enzymology, vol. 155, 1987, p. 335-350
Structure des protéines : quatre niveaux et les liaisons qui les tiennent
Difficulté 3 sur 5
Passer de la séquence à la forme, et savoir quelle liaison tient quoi. La structure primaire est la séquence des résidus reliés par des liaisons peptidiques covalentes, lue de l'extrémité N-terminale vers l'extrémité C-terminale. La structure secondaire — hélice alpha, feuillet bêta, coude — est un motif local stabilisé par des liaisons hydrogène entre atomes du SQUELETTE peptidique, indépendamment de la nature des chaînes latérales ; elle est possible parce que la liaison peptidique est plane et rigide, son caractère partiel de double liaison interdisant la rotation. La structure tertiaire est le repliement tridimensionnel de la chaîne entière, tenu par des interactions entre CHAÎNES LATÉRALES : effet hydrophobe qui enfouit les résidus apolaires au cœur de la molécule, liaisons hydrogène, interactions ioniques entre résidus de charges opposées, et ponts disulfure, seules liaisons covalentes de ce niveau. La structure quaternaire n'existe que pour les protéines faites de plusieurs chaînes : c'est leur assemblage. Savoir en tirer les conséquences : la dénaturation par la chaleur, un pH extrême ou un agent chaotropique défait les niveaux supérieurs SANS rompre les liaisons peptidiques, ce qui explique qu'une protéine dénaturée conserve sa séquence ; une substitution d'un seul résidu enfoui peut déstabiliser tout le repliement alors que la même substitution en surface passe souvent inaperçue.
Chapitre : Biochimie
Organisation structurale des protéines
Prérequis : Acides aminés : ionisation, zwitterion et point isoélectrique, Expression génétique : transcription et traduction, Cohésion de la matière et interactions intermoléculaires, Enzymes, biocatalyseurs
Erreurs typiques (7)
Croire que la dénaturation rompt les liaisons peptidiques : elle défait les structures secondaire, tertiaire et quaternaire, la séquence reste intacte.
Confondre l'hélice alpha d'une protéine, qui est une seule chaîne enroulée sur elle-même et tenue par des liaisons hydrogène du squelette, avec la double hélice de l'ADN, qui est l'appariement de deux chaînes différentes.
Attribuer la structure secondaire aux chaînes latérales : elle ne dépend que des liaisons hydrogène du squelette peptidique.
Croire que toute protéine possède une structure quaternaire : celle-ci n’existe que si plusieurs chaînes polypeptidiques s’assemblent.
Traiter l'effet hydrophobe comme une attraction entre groupes apolaires, alors que c'est le gain d'entropie de l'eau libérée qui pousse ces groupes à s'enfouir.
Croire que la liaison peptidique tourne librement : son caractère partiel de double liaison la rend plane, et c’est cette contrainte qui rend les motifs réguliers possibles.
Confondre pont disulfure, liaison covalente entre deux résidus soufrés, et liaison hydrogène, beaucoup plus faible et non covalente.
Source : D. Nelson, M. Cox, Principes de biochimie de Lehninger, De Boeck
Cinétique michaélienne et inhibitions
Difficulté 4 sur 5
Vitesse initiale d'une réaction enzymatique en fonction de la concentration en substrat : hyperbole de saturation, constante de Michaelis KM (concentration pour laquelle la vitesse vaut la moitié de la vitesse maximale) et vitesse maximale, représentation en double inverse, effets d'un inhibiteur compétitif (KM apparent augmenté) et d'un inhibiteur non compétitif (vitesse maximale apparente abaissée).
Prérequis : Enzymes, biocatalyseurs, Vitesse de réaction et facteurs cinétiques
Erreurs typiques (5)
Lire KM comme une vitesse : c'est une concentration en substrat, celle pour laquelle la vitesse vaut la moitié de la vitesse maximale.
Croire qu'un KM élevé traduit une forte affinité de l'enzyme pour son substrat, alors que c'est l'inverse.
Attendre que la vitesse maximale soit atteinte pour une concentration finie en substrat, alors qu'elle n'en est que la limite.
Attribuer à un inhibiteur compétitif une baisse de la vitesse maximale : il augmente le KM apparent et laisse la vitesse maximale inchangée, un excès de substrat le déplaçant du site actif.
Confondre la vitesse initiale, mesurée sur la pente à l'origine, et la vitesse moyenne sur toute la durée du dosage.
Source : BO spécial n°1 du 11 février 2021 — programme de BCPST 1re année (SVT et mathématiques)
Dynamique des populations
Difficulté 4 sur 5
Croissance exponentielle et logistique (capacité de charge K), modèle de Malthus et de Verhulst, dynamique proie-prédateur (Lotka-Volterra, introduction).
Chapitre : Écologie
Dynamique des populations
Prérequis : Biodiversité et impact des activités humaines, Équations différentielles y' = ay + b
Erreurs typiques (3)
Appliquer le modèle exponentiel sans limite de ressources.
Confondre taux de croissance r et effectif N.
Interpréter K comme un maximum jamais dépassé (dépassement et oscillations possibles).
Source : N. Campbell, J. Reece et al., Biologie, Pearson
Licence 3 — 6 compétences · 0 avec exercice
Écologie fonctionnelle : traits, moyenne pondérée par les abondances et processus d'écosystème
Difficulté 4 sur 5
Passer de la liste des espèces au FONCTIONNEMENT de l'écosystème. Un trait fonctionnel est une caractéristique mesurable d'un individu qui pèse sur sa performance : surface foliaire spécifique, teneur en matière sèche, masse des graines, hauteur adulte. Deux descripteurs distincts d'une communauté : la moyenne pondérée par les abondances, qui résume le trait de l'espèce dominante et prédit souvent la vitesse d'un processus ; et la DIVERSITÉ fonctionnelle, qui mesure l'étalement des traits et n'a pas de raison de suivre la richesse spécifique. La distinction entre traits de RÉPONSE, par lesquels une communauté encaisse une contrainte, et traits d'EFFET, par lesquels elle agit sur un processus — les deux ensembles se recouvrent parfois, jamais par principe. Le spectre d'économie foliaire comme axe de variation récurrent entre stratégies rapides et conservatrices. Et la limite de l'exercice : la corrélation d'un trait et d'un flux mesuré sur des parcelles ne suffit jamais à établir la causalité, que seule une manipulation expérimentale des communautés peut approcher.
Chapitre : Écologie fonctionnelle et fonctionnement des écosystèmes
Traits fonctionnels, structure de communauté et processus
Prérequis : Dynamique des populations, Biodiversité et impact des activités humaines, Écosystèmes et réseaux trophiques, Moyenne, médiane, effectifs et fréquences
Erreurs typiques (7)
Confondre richesse spécifique et diversité fonctionnelle : deux communautés de même richesse peuvent avoir des fonctions très différentes, et l'inverse est vrai aussi.
Calculer une moyenne de traits sans la pondérer par les abondances : une espèce rare à trait extrême pèse alors autant que l'espèce dominante.
Traiter la corrélation entre un trait moyen et un flux mesuré comme une relation de cause à effet, sans manipulation expérimentale.
Supposer qu'un trait de réponse à une contrainte est automatiquement un trait d'effet sur le fonctionnement.
Extrapoler une mesure faite sur des feuilles à l'échelle de l'écosystème sans passer par la biomasse correspondante.
Comparer des traits mesurés par des protocoles différents, alors que la comparabilité dépend entièrement de la standardisation des mesures.
Prendre la moyenne pondérée pour un résumé suffisant : elle ignore l'étalement, donc toute complémentarité entre espèces.
Source : M. Begon, C. Townsend, J. Harper, Écologie — de l'individu à l'écosystème, De Boeck
Édition ciblée du génome par CRISPR-Cas9
Difficulté 4 sur 5
Comprendre l'outil, ses conditions d'emploi et ses limites, sur les faits établis. Origine : un mécanisme d'immunité adaptative procaryote, détourné en outil de laboratoire. Reconnaissance de la cible : un ARN guide apparie une vingtaine de nucléotides de la séquence visée, mais la nucléase ne coupe QUE si un motif court adjacent — le motif PAM — est présent sur l'ADN ; sans lui, pas de clivage, quel que soit l'appariement. Le clivage produit une cassure double brin, et c'est la RÉPARATION qui décide du résultat : la jonction d'extrémités non homologues laisse de petites insertions ou délétions, donc invalide le gène ; la recombinaison homologue, en présence d'une matrice fournie, permet un remplacement dirigé, mais elle est bien plus rare et dépend de la phase du cycle cellulaire. Ce que la méthode ne garantit pas : la spécificité — des coupures hors cible existent, se prédisent mal et se MESURENT ; et l'homogénéité — sans clonage, une population éditée est mosaïque. Distinction structurante, technique avant d'être réglementaire : une modification somatique ne concerne que l'individu traité, une modification germinale se transmet à sa descendance.
Chapitre : Biotechnologies et génie génétique
Édition du génome : ciblage, clivage, réparation, contrôles
Prérequis : Structure de l'ADN, Réplication de l'ADN, Mutations, Expression génétique : transcription et traduction
Erreurs typiques (7)
Croire que l'ARN guide suffit à déclencher la coupure : sans motif PAM adjacent sur l'ADN, la nucléase ne coupe pas, même parfaitement appariée.
Attendre une correction précise sans fournir de matrice de réparation : en l'absence de matrice, la cellule referme la cassure par jonction d'extrémités et laisse des insertions ou délétions.
Confondre l'outil et le résultat : CRISPR-Cas9 crée une cassure ciblée, c'est la voie de réparation employée par la cellule qui détermine la modification obtenue.
Tenir la méthode pour spécifique par construction : les coupures hors cible existent, et un travail sérieux les mesure au lieu de les supposer absentes.
Croire qu'une population éditée est homogène : sans clonage ni tri, elle est mosaïque, ce qui fausse toute mesure faite en vrac.
Confondre modification somatique, limitée à l'individu traité, et modification germinale, transmise à la descendance.
Oublier les contrôles élémentaires : absence d'ARN guide, guide non ciblant, et vérification de la séquence obtenue plutôt que du phénotype seul.
Source : M. Jinek, K. Chylinski, I. Fonfara, M. Hauer, J. A. Doudna, E. Charpentier, « A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity », Science, 337(6096), 816-821, 2012
Expression différentielle en RNA-seq : normalisation, log2 fold change et tests multiples
Difficulté 4 sur 5
Passer d'une table de comptages de lectures à une liste de gènes différentiellement exprimés, en sachant ce que chaque étape suppose. Pourquoi un comptage brut n'est pas comparable d'un échantillon à l'autre : profondeur de séquençage, composition de la librairie, longueur du transcrit. Ce que mesure un log2 fold change et pourquoi on travaille en logarithme de base 2 : la symétrie entre une multiplication et une division par le même facteur. Pourquoi un test par gène sur des dizaines de milliers de gènes produit des milliers de faux positifs au seuil de 5 %, et ce que corrige la procédure de Benjamini-Hochberg : elle contrôle la proportion attendue de faux positifs PARMI les gènes déclarés (le taux de fausses découvertes), et non la probabilité d'en commettre un seul. Lire un volcano plot : l'amplitude en abscisse, la significativité en ordonnée, et la raison pour laquelle les deux sont nécessaires. Distinguer significativité statistique et pertinence biologique, et savoir qu'une réplication BIOLOGIQUE ne se remplace pas par une réplication technique.
Chapitre : Génomique fonctionnelle et analyse de données à haut débit
Prérequis : Expression génétique : transcription et traduction, Dispersion : étendue, quartiles, écart-type, Probabilités conditionnelles et indépendance, Fonction logarithme népérien
Erreurs typiques (7)
Comparer des comptages bruts d'un échantillon à l'autre sans corriger la profondeur de séquençage ni la composition de la librairie.
Lire une valeur p ajustée comme la probabilité que le gène ne soit pas différentiel : un taux de fausses découvertes de 5 % est la proportion attendue de faux positifs parmi les gènes DÉCLARÉS différentiels.
Conclure « ce gène n'est pas différentiellement exprimé » d'une valeur p non significative : l'absence de preuve n'est pas la preuve de l'absence, surtout à faible nombre de réplicats.
Confondre fold change et log2 fold change : un log2 fold change de moins 1 est une division par 2, pas une diminution de 1 %.
Prendre le nombre de lectures pour une mesure d'abondance absolue, alors qu'il dépend aussi de la longueur du transcrit.
Multiplier les réplicats techniques en croyant remplacer des réplicats biologiques : seuls les seconds échantillonnent la variabilité que le test doit estimer.
Trier les gènes sur la seule amplitude : les plus grands log2 fold change sont souvent portés par des gènes faiblement exprimés, donc très bruités.
Source : T. A. Brown, Génomes, De Boeck
Potentiel de membrane : équilibre de Nernst et équation de Goldman
Difficulté 4 sur 5
Traiter QUANTITATIVEMENT ce que la terminale décrit qualitativement. Une membrane sépare deux compartiments de compositions ioniques différentes ; deux forces s'exercent sur chaque ion, le gradient de concentration et le champ électrique. Le potentiel d'équilibre d'un ion est la différence de potentiel qui annule exactement le flux net de cet ion : l'équilibre de Nernst, où le terme de concentration est le logarithme népérien du rapport des concentrations externe et interne, divisé par la valence de l'ion. Le potentiel de repos de la membrane n'est le potentiel d'équilibre d'AUCUN ion : c'est le potentiel qui annule le courant TOTAL, donné par l'équation de Goldman-Hodgkin-Katz, où chaque ion pèse sa perméabilité relative. Conséquences à savoir lire : la membrane au repos, très perméable au potassium, s'installe près du potentiel d'équilibre du potassium ; l'ouverture des canaux sodiques pendant le potentiel d'action fait basculer les perméabilités et donc le potentiel ; la force électromotrice nette qui s'exerce sur un ion est l'écart entre le potentiel de membrane et le potentiel d'équilibre de cet ion, et c'est elle, non le seul gradient, qui donne le sens du courant. Les gradients eux-mêmes sont entretenus par le transport actif, dont le coût énergétique est la contrepartie du potentiel de repos.
Chapitre : Neurosciences cellulaires et intégratives
Électrophysiologie de la membrane : potentiel de repos et forces électromotrices
Prérequis : Échanges membranaires : diffusion et osmose, Potentiel d'action et transmission synaptique, Pile électrochimique, Fonction logarithme népérien, Potentiel d'électrode et relation de Nernst
Erreurs typiques (7)
Confondre le potentiel d'équilibre d'un ion et le potentiel de repos de la membrane : le repos n'est le potentiel d'équilibre d'aucun ion, il annule le courant TOTAL et non le flux de chaque ion pris à part.
Attribuer le potentiel de repos à la pompe sodium-potassium elle-même : la pompe entretient les GRADIENTS, mais la différence de potentiel vient des perméabilités relatives de la membrane à ces gradients.
Inverser le rapport des concentrations dans le logarithme, et donc le signe du potentiel d'équilibre : le rapport est celui de la concentration EXTERNE sur la concentration INTERNE.
Oublier la valence : diviser par 1 au lieu de 2 pour le calcium, ou ignorer que la valence du chlorure est négative, ce qui inverse le rapport pour cet anion.
Laisser la température en degrés Celsius dans le facteur RT/F, ou employer un logarithme décimal sans le facteur 2,303 qui le relie au logarithme népérien.
Croire que les concentrations ioniques changent notablement pendant un potentiel d'action : le nombre de charges déplacées est infime devant les quantités présentes de part et d'autre.
Déduire le sens du flux net du seul gradient de concentration, sans retrancher le potentiel d'équilibre au potentiel de membrane.
Source : E. Kandel, J. Schwartz, T. Jessell, S. Siegelbaum, A. Hudspeth, Principes de neurosciences, Lavoisier — Médecine Sciences
Déterminer la structure d'une macromolécule : diffraction, résolution, cryo-microscopie
Difficulté 5 sur 5
Comprendre d'où vient un modèle atomique de protéine ou d'acide nucléique, et ce qu'il vaut. Cristallographie aux rayons X : le cristal comme réseau qui amplifie une diffusion sinon indétectable, la condition de Bragg qui relie l'angle de diffraction à la distance entre plans réticulaires et à la longueur d'onde, la carte de densité électronique obtenue par transformation de Fourier, et le problème des phases — les intensités sont mesurées, les phases ne le sont pas. Ce que signifie la résolution en angströms : un nombre PLUS PETIT décrit une carte PLUS détaillée ; à 3 angströms on suit la chaîne principale, à 1,5 on distingue les molécules d'eau, jamais les hydrogènes en routine. Cryo-microscopie électronique : particules isolées congelées, moyennage de dizaines de milliers d'images, pas de cristal à obtenir. Résonance magnétique nucléaire en solution pour les petites protéines et les états mobiles. Et la règle de lecture commune aux trois : un modèle déposé est l'INTERPRÉTATION d'une densité, moyennée sur un très grand nombre de copies et sur le temps de la mesure, avec des régions désordonnées que personne n'a modélisées.
Chapitre : Biologie structurale
Méthodes de détermination de structure et lecture critique d'un modèle
Prérequis : Interférences et diffraction, Cohésion de la matière et interactions intermoléculaires, Enzymes, biocatalyseurs, Photon et spectres atomiques
Erreurs typiques (7)
Lire une structure cristallographique comme la photographie d'une molécule unique, alors qu'elle est une moyenne sur des milliards de copies et sur la durée de la mesure.
Croire qu'une résolution numériquement plus grande est meilleure : une carte à 3,5 angströms est MOINS résolue qu'une carte à 1,5 angström.
Attendre de voir les atomes d'hydrogène sur une carte de densité électronique de résolution courante : ils n'y sont pas.
Prendre le problème des phases pour un problème d'intensité : ce sont bien les intensités qui sont mesurées, et l'information de phase qui manque.
Oublier que les régions absentes du fichier déposé ne sont pas absentes de la molécule : elles sont désordonnées, donc non modélisables.
Croire que la cryo-microscopie électronique se passe de tout échantillonnage statistique : elle remplace le cristal par le moyennage de dizaines de milliers de particules.
Confondre le facteur d'agitation thermique d'un atome avec une erreur de mesure sur sa position.
Source : G. Rhodes, Crystallography Made Crystal Clear, 3e édition, Academic Press, 2006
Dynamique d'un circuit de régulation génique : fonction de Hill, rétroactions, bistabilité
Difficulté 5 sur 5
Écrire et exploiter le modèle dynamique d'un petit circuit de régulation. Le bilan d'une protéine s'écrit production moins disparition ; la disparition rassemble la dégradation propre et la DILUTION par la croissance, ce qui fixe le temps caractéristique de la réponse. La production régulée s'écrit avec une fonction de Hill : une sigmoïde dont le seuil est la concentration de demi-activation et dont l'exposant mesure la coopérativité apparente, pas un nombre de sites mesuré. Ce que l'on sait lire sur ce modèle : l'état stationnaire, obtenu graphiquement à l'intersection de la courbe de production et de la droite de disparition ; l'effet d'une rétroaction NÉGATIVE, qui accélère la réponse et stabilise le niveau ; l'effet d'une rétroaction POSITIVE coopérative, qui peut créer TROIS intersections, donc deux états stables séparés par un état instable — la bistabilité, base d'un interrupteur cellulaire et d'une mémoire sans changement de génome. Les motifs récurrents des réseaux réels, en particulier la boucle d'anticipation cohérente, se lisent comme des filtres temporels.
Chapitre : Biologie des systèmes et modélisation du vivant
Circuits de régulation : états stationnaires, rétroactions, bistabilité
Prérequis : Expression génétique : transcription et traduction, Équations différentielles y' = ay + b, Loi de vitesse d'ordre 1, Variations et optimisation, Cinétique michaélienne et inhibitions
Erreurs typiques (7)
Confondre état stationnaire et équilibre thermodynamique : à l'état stationnaire la production compense la disparition, et le système consomme de l'énergie en permanence.
Croire qu'une rétroaction négative stabilise toujours : avec un retard ou une coopérativité forte, la même boucle produit des oscillations.
Lire l'exposant de la fonction de Hill comme un nombre de sites de fixation mesuré, alors que c'est un paramètre d'ajustement de la coopérativité apparente.
Omettre la dilution par la croissance dans le taux de disparition d'une protéine stable : pour beaucoup de protéines bactériennes, c'est le terme dominant.
Conclure à la bistabilité d'une seule simulation : il faut faire varier les conditions initiales, et deux états stables ne se voient que là.
Prendre le temps de réponse pour une propriété du promoteur seul, alors qu'il est fixé par le taux de disparition.
Comparer des concentrations sans les rapporter au seuil de demi-activation, alors que le comportement du circuit ne dépend que de ce rapport.
Source : U. Alon, An Introduction to Systems Biology — Design Principles of Biological Circuits, Chapman & Hall / CRC