Biologie · Première · 17 min de lecture
Les enzymes : des protéines qui catalysent
Spécificité de substrat et d'action, site actif, complexe enzyme-substrat, influence de la température et du pH, vitesse initiale en fonction de la concentration en substrat.
Chapitre du programme : Transmission, variation et expression du patrimoine génétique
Bloc 1 sur 7 · Comprendre
Comprendre : une protéine qui accélère sans se consommer
La progression te mène ici : un gène est transcrit puis traduit en une protéine ; une mutation peut modifier cette protéine ; reste à voir ce que fait une protéine. Le cas le plus important est celui des enzymes, sans lesquelles rien, dans une cellule, n'irait assez vite pour qu'elle vive.
Le problème de la vitesse. Les réactions chimiques du vivant — digérer l'amidon, copier l'ADN, brûler le glucose — sont thermodynamiquement possibles, mais à °C elles seraient d'une lenteur désespérante si elles se déroulaient seules : un morceau de pain laissé dans un verre d'eau tiède met des semaines à se dégrader, ta salive commence à le digérer en quelques secondes. La différence, c'est une enzyme, l'amylase.
Une enzyme est une protéine qui catalyse une réaction chimique : elle l'accélère considérablement, elle ne modifie pas le bilan de la réaction, et elle ressort intacte — une même molécule d'enzyme peut transformer des milliers de molécules à la suite. Comme tout catalyseur, elle n'est ni un réactif ni un produit.
Le vocabulaire du couple. La molécule transformée est le substrat ; ce qu'on obtient, le produit. L'amylase a pour substrat l'amidon et donne du maltose ; la lactase a pour substrat le lactose et donne du glucose et du galactose ; la pepsine de l'estomac hydrolyse les protéines en peptides ; la lipase, les triglycérides en acides gras et glycérol.
Le site actif, ou pourquoi l'enzyme est une protéine. Une protéine est une chaîne d'acides aminés repliée sur elle-même en une forme précise dans l'espace, dictée par sa séquence. Dans cette forme existe une petite cavité, le site actif, dont la géométrie et les propriétés chimiques sont complémentaires du substrat — comme une serrure et sa clé. Le substrat s'y fixe, et forme avec l'enzyme un complexe enzyme-substrat ; c'est dans ce complexe que la transformation a lieu ; puis les produits sont libérés, et le site actif est libre pour la molécule suivante.
La double spécificité. Parce que le site actif n'accepte qu'une forme, une enzyme est spécifique de son substrat : l'amylase ne fait rien du lactose, la lactase rien de l'amidon. Et parce que la disposition des acides aminés du site n'autorise qu'une transformation, elle est spécifique de son action : sur un même substrat, deux enzymes différentes catalysent deux réactions différentes. Cette double spécificité est l'exact contraire d'un catalyseur chimique passe-partout.
Un lien direct avec la génétique. La forme du site actif découle de la séquence des acides aminés, donc de la séquence du gène. Une mutation faux-sens qui touche un acide aminé du site actif peut rendre l'enzyme inactive : c'est ainsi que naissent bien des maladies génétiques du métabolisme — et c'est pourquoi une leçon sur les enzymes ferme un chapitre ouvert par l'ADN.
Bloc 2 sur 7 · Approfondir
Approfondir : de quoi dépend la vitesse d'une enzyme ?
On étudie une enzyme en mesurant la vitesse initiale de la réaction — la quantité de produit formée par unité de temps, au tout début, quand rien n'a encore changé dans le tube. C'est cette vitesse qu'on fait varier en changeant, un à un, les paramètres.
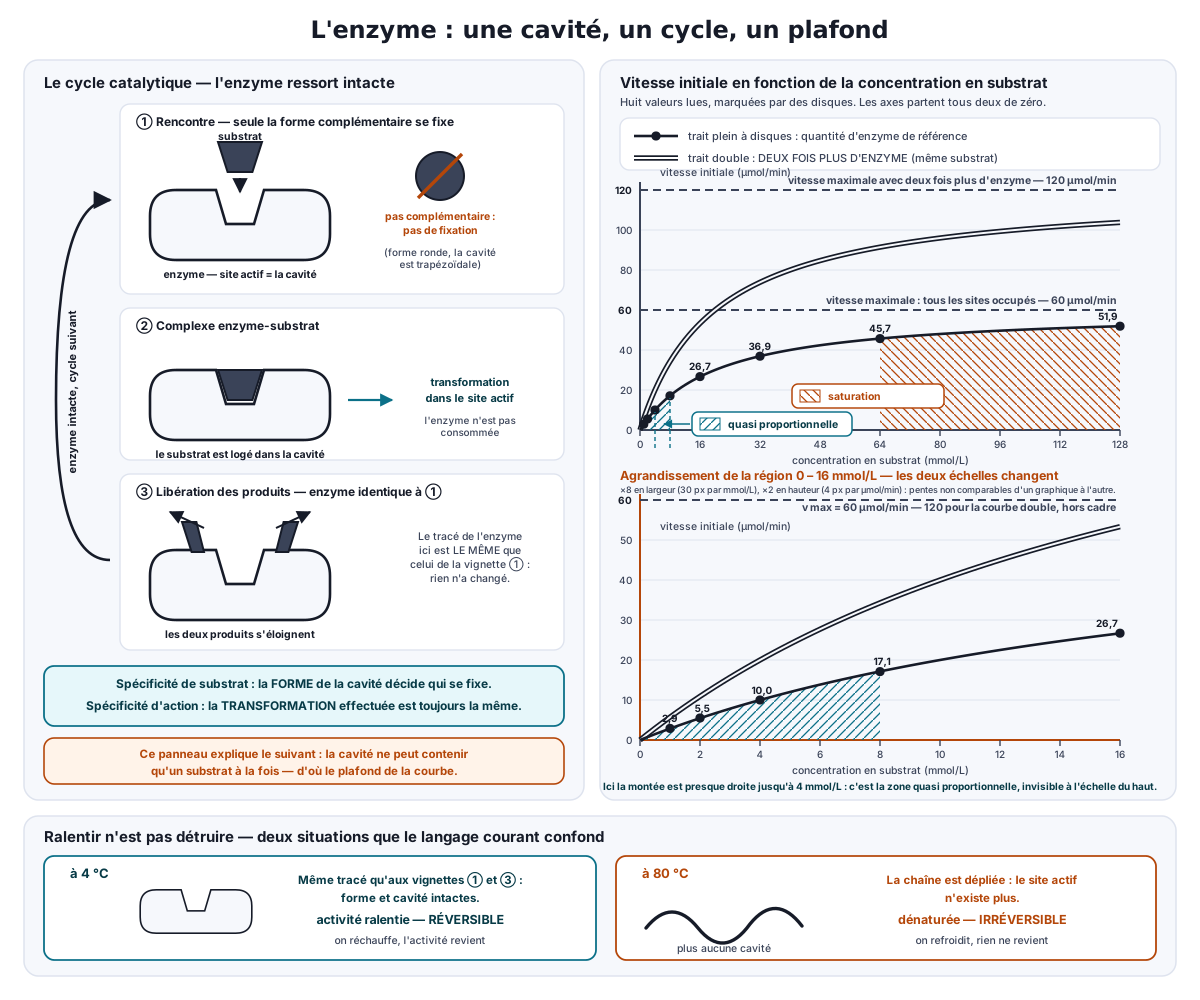
La concentration en substrat : proportionnalité, puis saturation. À faible concentration en substrat, les sites actifs sont le plus souvent libres : chaque molécule de substrat qui arrive trouve une enzyme disponible, et doubler la concentration double la vitesse — la vitesse est quasi proportionnelle à la concentration. Mais à mesure que le substrat abonde, les sites actifs sont de plus en plus souvent occupés : une molécule de substrat doit attendre qu'un site se libère. La vitesse augmente alors de moins en moins vite, et finit par plafonner à une valeur maximale, atteinte quand chaque molécule d'enzyme travaille sans interruption. C'est la saturation. Au plateau, ajouter du substrat ne change plus rien : c'est la quantité d'enzyme qui limite.
La courbe de la vitesse initiale en fonction de la concentration en substrat a donc une forme caractéristique : une montée presque droite au départ, une courbure, puis un plateau. Retiens la forme et son explication ; aucune équation de cette courbe n'est au programme — on lit des valeurs dans un tableau ou sur un graphique, on les compare, et l'on conclut.
La concentration en enzyme. Doubler la quantité d'enzyme double le nombre de sites actifs, donc la vitesse — à toute concentration en substrat, plateau compris. La vitesse maximale est proportionnelle à la concentration en enzyme : c'est le meilleur test pour vérifier qu'une réaction est bien catalysée par une enzyme.
La température : deux effets contraires. Chauffer accélère toute réaction chimique, enzymatique ou non : les molécules se rencontrent plus souvent. Mais une enzyme est une protéine, et sa forme tient à des liaisons fragiles. Au-delà d'une certaine température, ces liaisons cèdent, la chaîne se déplie, le site actif perd sa géométrie : l'enzyme est dénaturée, et la dénaturation par la chaleur est irréversible — refroidir ne restaure pas la forme. La courbe de l'activité en fonction de la température a donc un optimum : autour de °C pour les enzymes humaines, puis une chute brutale. À °C, quelques minutes suffisent à détruire l'activité. Le froid, lui, ne fait que ralentir : une enzyme placée à °C travaille lentement mais garde sa forme, et retrouve toute son activité une fois réchauffée. Ralentissement réversible d'un côté, destruction irréversible de l'autre : ce n'est pas la même chose.
Le pH. Même logique : la forme du site actif dépend des charges portées par certains acides aminés, qui dépendent du pH. Chaque enzyme a un pH optimal, adapté au milieu où elle travaille : la pepsine de l'estomac est active vers pH , l'amylase de la salive vers pH . Placée dans l'estomac, l'amylase cesse d'agir ; la pepsine, dans l'intestin, aussi. Un écart de pH important dénature l'enzyme comme le fait la chaleur.
Une enzyme absente, un phénotype visible. Chez la plupart des adultes de la population mondiale, la production de lactase par l'intestin diminue fortement après l'enfance : le lactose du lait n'est plus hydrolysé, reste dans l'intestin, et provoque les troubles de l'intolérance au lactose. Un phénotype macroscopique, expliqué par une activité enzymatique — et l'activité enzymatique est un phénotype moléculaire, issu de l'expression d'un gène. La chaîne de la leçon précédente se referme.
Bloc 3 sur 7 · Exemple
Exemple guidé : lire la saturation dans un tableau
Énoncé. On mesure la vitesse initiale de l'hydrolyse de l'amidon par l'amylase, à °C et à pH , pour des concentrations croissantes en amidon, la quantité d'enzyme étant la même dans chaque tube. Valeurs arrondies au dixième.
| Concentration en substrat (mmol/L) | Vitesse initiale (µmol/min) |
|---|---|
| 1 | 2,9 |
| 2 | 5,5 |
| 4 | 10,0 |
| 8 | 17,1 |
| 16 | 26,7 |
| 32 | 36,9 |
| 64 | 45,7 |
| 128 | 51,9 |
- Quand la concentration passe de à mmol/L, par quel facteur la vitesse est-elle multipliée ? Interpréter.
- Même question de à mmol/L.
- Décrire l'allure de la courbe de la vitesse en fonction de la concentration, et expliquer sa forme.
- On refait la série avec deux fois plus d'amylase. Que devient la vitesse mesurée à mmol/L ?
---
1. Aux faibles concentrations. On lit et µmol/min. Rapport :
La concentration a doublé, la vitesse a presque doublé : à ces concentrations, presque chaque molécule de substrat trouve un site actif libre, et la vitesse est quasi proportionnelle à la concentration.
2. Aux fortes concentrations. et µmol/min :
La concentration a doublé, la vitesse n'a gagné qu'un dixième : les sites actifs sont presque tous occupés en permanence, l'enzyme est proche de la saturation. Ajouter du substrat n'accélère plus guère la réaction.
3. L'allure. Les points tracés dessinent une courbe qui monte presque en droite au départ (de à mmol/L, la vitesse fait à peu près puis à chaque doublement), s'incurve ensuite (, , ), et tend vers un plateau au-delà de mmol/L (, ). Explication : la vitesse est limitée par la fréquence des rencontres substrat–site actif tant que les sites sont libres, puis par le nombre de sites quand ils sont tous pris. Le plateau est la vitesse maximale, fixée par la quantité d'enzyme présente.
4. Deux fois plus d'enzyme. Deux fois plus de sites actifs : la vitesse double à toute concentration, plateau compris. À mmol/L, on attend environ
Le plateau lui-même est déplacé : c'est bien l'enzyme, et non le substrat, qui le fixe.
Contrôle. Un rapport de vitesses ne dépasse jamais le facteur par lequel la concentration a été multipliée : si tu trouves une vitesse multipliée par plus de pour une concentration doublée, relis le tableau. Et le rapport doit décroître quand la concentration monte : , , , , , , — c'est la signature de la saturation.
Bloc 4 sur 7 · Visualiser
Visualiser : le site actif et la courbe de saturation
Figure (fig.biology.enzyme-saturation, SVG programmatique à produire) : deux panneaux côte à côte, le mécanisme à gauche, la courbe à droite.
- Panneau gauche — le cycle catalytique. Trois vignettes en boucle. (1) Une enzyme dessinée comme une forme arrondie avec une cavité de contour précis ; un substrat de forme complémentaire s'en approche ; à côté, une molécule d'une autre forme, barrée, avec la mention « pas complémentaire : pas de fixation ». (2) Le complexe enzyme-substrat : le substrat logé dans la cavité, avec la mention « transformation dans le site actif ». (3) Les produits libérés, deux fragments qui s'éloignent, et l'enzyme identique à la vignette 1, avec une flèche de retour vers (1) portant « enzyme intacte, cycle suivant ». Cartouche : « spécificité de substrat : la forme ; spécificité d'action : la transformation ».
- Panneau droit — la courbe. Axe horizontal : concentration en substrat, en mmol/L, gradué de à , à partir de zéro. Axe vertical : vitesse initiale en µmol/min, gradué de à . Les huit points du tableau de l'exemple sont marqués par des disques et reliés par une courbe lisse qui part de l'origine, monte presque en ligne droite jusqu'à mmol/L, s'incurve et s'aplatit vers un plateau. Une ligne horizontale en pointillé au-dessus des derniers points, légendée « vitesse maximale : tous les sites occupés ». Deux zones hachurées différemment sous la courbe : « quasi proportionnelle » à gauche, « saturation » à droite. Une seconde courbe, en trait distinct, deux fois plus haute en tout point, légendée « deux fois plus d'enzyme ».
- Bandeau du bas : deux miniatures. À gauche, l'enzyme à °C, forme intacte, avec « ralentie, réversible » ; à droite, l'enzyme à °C dépliée en une chaîne sans cavité, avec « dénaturée, irréversible ».
Ce qu'il faut lire. Le panneau gauche explique le panneau droit : la courbe plafonne parce que la cavité ne peut contenir qu'un substrat à la fois. La courbe « deux fois plus d'enzyme » montre ce qui fixe le plateau. Et le bandeau sépare, à la même température de lecture, deux situations que le langage courant confond : ralentir et détruire.
La figure en détail : la figure comprend deux parties. À gauche, trois dessins forment un cycle. Le premier montre une enzyme, forme arrondie creusée d'une cavité de contour précis, vers laquelle se dirige une molécule de substrat de forme complémentaire ; une autre molécule, de forme différente, est barrée pour indiquer qu'elle ne peut pas se fixer. Le deuxième montre le substrat logé dans la cavité, formant le complexe enzyme-substrat. Le troisième montre deux fragments, les produits, qui s'éloignent d'une enzyme redevenue identique à celle du premier dessin, une flèche renvoyant au début du cycle. À droite, un graphique représente la vitesse initiale d'une réaction, en micromoles par minute, en fonction de la concentration en substrat, en millimoles par litre, les deux axes partant de zéro. Huit points reliés par une courbe lisse dessinent une montée presque droite au départ, puis une courbure, puis un aplatissement vers un plateau souligné par une ligne horizontale pointillée nommée vitesse maximale. Une seconde courbe, deux fois plus haute en tout point, correspond à une quantité d'enzyme doublée. En bas, deux petits dessins comparent l'enzyme au froid, forme conservée et activité ralentie de façon réversible, et l'enzyme fortement chauffée, chaîne dépliée sans cavité, dénaturée de façon irréversible.
Bloc 5 sur 7 · Formules
Ce qu'il faut retenir
| Relation ou règle | Énoncé | Domaine de validité |
|---|---|---|
| Nature | une enzyme est une protéine, produit de l'expression d'un gène | tous les êtres vivants |
| Catalyse | accélère la réaction, ne change pas son bilan, ressort intacte | comme tout catalyseur |
| Spécificité | de substrat (forme du site actif) et d'action (transformation catalysée) | complémentarité site actif – substrat |
| Concentration en substrat | vitesse quasi proportionnelle aux faibles concentrations, plateau (saturation) aux fortes | quantité d'enzyme fixée |
| Concentration en enzyme | vitesse, plateau compris, proportionnelle à la quantité d'enzyme | substrat en excès ou non |
| Température | optimum (≈ °C chez l'humain) ; froid = ralentissement réversible ; chaleur excessive = dénaturation irréversible | protéines en général |
| pH | optimum propre à chaque enzyme (pepsine ≈ , amylase ≈ ) ; écart important = dénaturation | milieu de fonctionnement |
Les unités. Concentration en mol/L ou mmol/L ; vitesse initiale en quantité de produit par unité de temps, par exemple µmol/min ; un rapport de deux vitesses est sans unité. Une température en degrés Celsius, un pH sans unité.
Ce qui n'est pas au programme. L'équation de la courbe de saturation et ses constantes relèvent de l'enseignement supérieur. En première, on lit un tableau ou un graphique, on compare des rapports, on nomme le régime — proportionnel, en courbure, saturé — et on l'explique par l'occupation des sites actifs.
Bloc 6 sur 7 · Pièges
Pièges fréquents
- Croire que l'enzyme est consommée par la réaction. Elle libère les produits et ressort intacte, prête pour la molécule suivante : une seule molécule d'enzyme catalyse des milliers de transformations. Si l'enzyme disparaissait, elle serait un réactif, pas un catalyseur.
- Penser que la vitesse augmente indéfiniment avec la concentration en substrat. Elle plafonne : quand tous les sites actifs sont occupés, le substrat ajouté attend. Un rapport qui tombe de à le long d'un tableau est la marque de cette saturation.
- Confondre dénaturation et ralentissement au froid. À °C, l'enzyme garde sa forme et ne fait que ralentir — réversible. À °C, sa chaîne se déplie, le site actif disparaît — irréversible, refroidir ne répare rien. Une enzyme « inactive » n'est pas toujours une enzyme détruite.
- Croire qu'une enzyme digestive digère tout. L'amylase n'hydrolyse pas le lactose, la lactase n'hydrolyse pas l'amidon : chaque enzyme est spécifique d'un substrat, par la forme de son site actif. Il n'existe pas d'enzyme universelle.
- Attribuer le plateau à un manque de substrat. C'est l'inverse : au plateau, le substrat est en excès et c'est l'enzyme qui manque. La preuve : doubler la quantité d'enzyme double le plateau.
- Oublier que « plus chaud » n'est pas « plus vite » pour une protéine. Jusqu'à l'optimum, oui ; au-delà, l'activité s'effondre. La courbe de l'activité en fonction de la température a un sommet, pas une montée sans fin.
- Comparer des vitesses mesurées dans des conditions différentes. Un rapport de vitesses n'a de sens que si température, pH et quantité d'enzyme sont identiques entre les tubes comparés. Vérifie l'énoncé avant de diviser.
- Détacher l'enzyme de la génétique. Sa forme vient de sa séquence, sa séquence du gène. Une mutation faux-sens dans le site actif peut annuler l'activité : c'est la même chaîne ADN → protéine → phénotype que dans les leçons précédentes, vue depuis son dernier maillon.
Bloc 7 sur 7 · Vérifier
Vérifier : comparer deux vitesses initiales
Le modèle d'entraînement. L'exercice associé à cette leçon affiche un tableau de vitesses initiales de l'hydrolyse d'un substrat réel par son enzyme — amylase et amidon, lactase et lactose, pepsine et protéines… — pour des concentrations doublées de ligne en ligne, et demande le rapport entre deux vitesses lues, arrondi au dixième. Selon la zone tirée, le rapport vaut presque le facteur de concentration (régime quasi proportionnel) ou nettement moins (saturation), et le corrigé nomme le régime. Un modèle voisin, à choix multiples, interroge les faits : l'enzyme est-elle consommée, telle enzyme accepte-t-elle tel substrat, une enzyme chauffée à °C fonctionne-t-elle de nouveau après refroidissement.
Énoncé type. On mesure la vitesse initiale de l'hydrolyse du lactose par la lactase, à °C et à pH optimal, pour des concentrations croissantes en substrat (quantité d'enzyme identique dans chaque tube) :
| Concentration en substrat (mmol/L) | Vitesse initiale (µmol/min) |
|---|---|
| 2 | 20,0 |
| 4 | 26,7 |
| 8 | 32,0 |
Par quel facteur la vitesse initiale est-elle multipliée quand la concentration en substrat passe de à mmol/L ? Donner le rapport arrondi au dixième.
Corrigé complet.
1. Lire les deux vitesses. µmol/min et µmol/min.
2. Calculer le rapport.
3. Interpréter. La concentration a été multipliée par , la vitesse seulement par : la vitesse augmente nettement moins vite que la concentration. Une part importante des sites actifs est déjà occupée à chaque instant — l'enzyme approche de la saturation. La ligne suivante le confirme : de à mmol/L, le rapport n'est plus que .
Réponse : le rapport vaut environ ; la vitesse n'est plus proportionnelle à la concentration.
Auto-contrôle. Ai-je divisé la vitesse à la plus grande concentration par la vitesse à la plus petite ? Mon rapport est-il inférieur ou égal au facteur de concentration ? Et ai-je nommé le régime — proportionnel ou saturé — plutôt que d'en rester au nombre ?
Sources
- BO spécial n°1 du 22 janvier 2019 — programme de spécialité sciences de la vie et de la Terre de première générale, thème « La Terre, la vie et l'organisation du vivant » : transmission, variation et expression du patrimoine génétique — les enzymes, des biomolécules aux propriétés catalytiques
- N. Campbell, J. Reece et al., Biologie, Pearson — chapitre « Introduction au métabolisme » (enzymes, site actif, facteurs de l'activité enzymatique)
- B. Alberts et al., Biologie moléculaire de la cellule, Lavoisier — chapitre « Protéines » (les enzymes comme catalyseurs, complexe enzyme-substrat)
Continuer
Autres leçons — Biologie
- Le croisement monohybride : prévoir la descendance pour un gène
- Chromosomes et caryotype : l'information génétique rangée par paires
- Gènes et allèles : pourquoi deux individus ne se ressemblent pas
- Reproduction sexuée : comment les chromosomes passent d'une génération à l'autre
- Arbres phylogénétiques : lire la parenté entre les espèces
- Le système nerveux : capter, décider, commander
- La communication hormonale : un message porté par le sang
- Observer au microscope
- La cellule, unité du vivant
- Classification emboîtée du vivant
- Écosystèmes et réseaux trophiques
- Digestion et nutriments
- Respiration et échanges gazeux
- La circulation sanguine
- La cellule eucaryote : des compartiments spécialisés
- L'ADN : une double hélice porteuse d'information
- La sélection naturelle : un tri sans intention
- La dérive génétique : quand le hasard seul fait évoluer
- La biodiversité : trois échelles sous pression
- Cycle cellulaire et mitose : copier, puis répartir
- La réplication de l'ADN : une copie semi-conservative
- Du gène à la protéine : transcription et traduction
- Les mutations : quand la copie change le texte
- L'immunité adaptative : spécifique, amplifiée, mémorisée
- La méiose : diviser par deux, et brasser
- Deux gènes à la fois : indépendants ou liés ?
- L'équilibre de Hardy-Weinberg : le modèle de référence
- Le potentiel d'action : un message tout ou rien
- La régulation de la glycémie
- Contraction musculaire et énergie
- La photosynthèse : de la lumière à la matière
- La respiration cellulaire et l'ATP
- Le cycle du carbone
- L’immunité innée : une première défense immédiate
- Cinétique michaélienne et inhibitions enzymatiques
- La vaccination : préparer la mémoire immunitaire
- Acides aminés : ionisation, zwitterion, point isoélectrique
- Échanges membranaires : diffusion, osmose, transport actif
- La PCR : copier des millions de fois une région choisie