Biologie · Licence 1 · 19 min de lecture
Cinétique michaélienne et inhibitions enzymatiques
Vitesse initiale d'une réaction enzymatique en fonction de la concentration en substrat : hyperbole de saturation, constante de Michaelis KM (concentration pour laquelle la vitesse vaut la moitié de la vitesse maximale) et vitesse maximale, représentation en double inverse, effets d'un inhibiteur compétitif (KM apparent augmenté) et d'un inhibiteur non compétitif (vitesse maximale apparente abaissée).
Chapitre du programme : Biochimie
Bloc 1 sur 7 · Comprendre
Comprendre : mettre la saturation en équation
En première, tu as observé qu'une enzyme sature : la vitesse initiale augmente d'abord presque proportionnellement à la concentration en substrat, puis de moins en moins, puis plafonne. Tu lisais des rapports de vitesses dans un tableau et tu nommais le régime. On s'arrêtait là, faute d'équation. Cette équation existe, elle est simple, et c'est le point de départ de toute l'enzymologie quantitative.
Équation de Michaelis-Menten. Pour une enzyme michaélienne, la vitesse initiale de la réaction dépend de la concentration en substrat selon
Deux paramètres, et deux seulement, décrivent le couple enzyme-substrat : la vitesse maximale , en quantité de produit par unité de volume et de temps, et la constante de Michaelis , qui est une concentration.
Pourquoi cette forme, en une phrase. La transformation passe par un complexe enzyme-substrat : le substrat se fixe sur le site actif, y est transformé, puis les produits sont libérés. La vitesse est donc proportionnelle à la fraction des sites actifs occupés. Quand le substrat est rare, cette fraction est proportionnelle à ; quand il abonde, elle tend vers , tous les sites travaillent en permanence, et la vitesse plafonne. Le quotient est exactement cette fraction : il vaut presque pour petit, et tend vers pour grand. La démonstration complète, qui suppose l'état quasi stationnaire du complexe, n'est pas au programme de cette fiche : on utilise l'équation.
Ce que signifie , et il faut le savoir par cœur. Fais dans l'équation :
est la concentration en substrat pour laquelle la vitesse initiale vaut la moitié de la vitesse maximale. C'est une concentration, elle s'exprime en mol/L (en pratique en µmol/L), et jamais en unité de vitesse.
et l'affinité : la relation est inversée. Un petit signifie que la demi-vitesse est atteinte pour très peu de substrat, donc que l'enzyme se sature vite, donc qu'elle a une forte affinité pour son substrat. Un grand signifie l'inverse. C'est contre-intuitif la première fois, et c'est l'erreur la plus fréquente du chapitre : plus est grand, plus l'affinité est faible.
n'est jamais atteinte. L'équation donne pour toute concentration finie : est une limite, l'asymptote horizontale de la courbe. On s'en approche — pour , pour — on ne l'atteint pas. Dire « la vitesse maximale est atteinte à partir de telle concentration » est un abus de langage qu'un correcteur relève.
Deux régimes, deux ordres. Pour , l'équation se simplifie en : la vitesse est proportionnelle à la concentration, la réaction se comporte comme une cinétique d'ordre 1 par rapport au substrat. Pour , : la vitesse ne dépend plus de la concentration, la réaction est d'ordre 0. Une même enzyme change donc d'ordre selon la concentration, ce qui n'arrive à aucune réaction chimique simple — et c'est un argument expérimental fort en faveur du mécanisme par complexe.
Bloc 2 sur 7 · Approfondir
Approfondir : l'affinité, et ce que déplace un inhibiteur
Mesurer, c'est inverser. On ne « voit » ni ni sur une courbe : on les en extrait. Trois manières, par ordre de rigueur croissante.
Par un couple de valeurs. Si l'on connaît et si l'on a mesuré une vitesse pour une concentration , l'équation s'inverse sans difficulté :
De la même façon, la concentration qui donne une vitesse mesurée vaut
Ces deux formules ne s'apprennent pas : elles se retrouvent en deux lignes à partir de l'équation, et c'est exactement ce qu'on attend d'un étudiant.
Par la représentation en double inverse. Prends l'inverse des deux membres :
En portant en fonction de , on obtient une droite : ordonnée à l'origine , pente , et abscisse à l'origine . C'est la représentation de Lineweaver-Burk. Son intérêt est de transformer une asymptote — difficile à lire — en une intersection avec un axe, qui se lit. Son défaut, qu'il faut connaître, est que les points de faible concentration, les moins précis, deviennent les plus éloignés et pèsent le plus lourd sur la droite : c'est un outil de lecture graphique, pas une méthode d'ajustement moderne.
Par saturation croissante. On peut aussi lire sur le plateau expérimental, puis à mi-hauteur. C'est la lecture la plus directe, la moins précise, et celle que la figure de cette leçon illustre.
Les inhibiteurs : deux façons d'éteindre une enzyme. Un inhibiteur est une molécule qui diminue l'activité enzymatique. Deux mécanismes sont au programme, et ils se distinguent par ce qu'ils changent dans l'équation.
Inhibiteur compétitif. Il ressemble au substrat et se fixe sur le site actif, dont il occupe la place. Substrat et inhibiteur se disputent le même site : c'est une compétition, et le substrat peut la gagner s'il est assez abondant. Conséquences :
- il faut plus de substrat pour atteindre la demi-vitesse : apparent augmente ;
- avec assez de substrat, l'inhibiteur est chassé du site : est inchangée. Quantitativement, en notant la concentration de l'inhibiteur et sa constante d'inhibition,
Inhibiteur non compétitif. Il se fixe ailleurs que sur le site actif, sur l'enzyme libre comme sur le complexe enzyme-substrat, et déforme la protéine de sorte qu'elle ne catalyse plus. Ajouter du substrat n'y change rien : l'inhibiteur n'occupe pas sa place. Conséquences symétriques :
- l'affinité du site actif est intacte : est inchangé ;
- une fraction des molécules d'enzyme est hors service en permanence : apparente diminue.
Le facteur est le même dans les deux cas ; c'est la grandeur sur laquelle il agit qui change. Retiens la logique plutôt que les deux formules : compétitif, on peut le noyer sous le substrat ; non compétitif, non.
Sur les deux graphiques. En double inverse, la distinction saute aux yeux : un inhibiteur compétitif change la pente sans changer l'ordonnée à l'origine — les droites se coupent sur l'axe des ordonnées, en ; un inhibiteur non compétitif change l'ordonnée à l'origine sans changer l'abscisse à l'origine — les droites se coupent sur l'axe des abscisses, en . C'est ainsi qu'on identifie expérimentalement le type d'un inhibiteur, alors que l'hyperbole seule laisse hésiter.
Pourquoi cela compte au-delà de l'examen. Beaucoup de médicaments sont des inhibiteurs enzymatiques, et le type d'inhibition décide de la stratégie : un inhibiteur compétitif voit son effet s'effondrer quand la concentration du substrat physiologique augmente, un inhibiteur non compétitif non. Le méthanol et l'éthanol se disputent l'alcool déshydrogénase — c'est une compétition, et c'est le principe du traitement de l'intoxication au méthanol.
Bloc 3 sur 7 · Exemple
Exemple guidé : quatre lectures d'une même courbe
Énoncé. Une solution purifiée de catalase catalyse la décomposition du peroxyde d'hydrogène en eau et dioxygène. À °C, une étude cinétique de cette préparation donne µmol/L et µmol/(L·min). (Ces deux valeurs décrivent la préparation de l'énoncé ; ce ne sont pas des valeurs relevées dans la littérature.)
- Quelle est la vitesse initiale pour µmol/L ?
- Quelle concentration en substrat donne une vitesse initiale de µmol/(L·min) ?
- On ne connaît plus , mais on a mesuré µmol/(L·min) pour µmol/L, et on sait que µmol/(L·min). Retrouver .
- On ajoute un inhibiteur de constante µmol/L à la concentration µmol/L. Donner les valeurs apparentes de et de , selon que l'inhibiteur est compétitif ou non compétitif.
---
1. Appliquer l'équation.
Lecture : , donc la fraction de sites occupés vaut , et la vitesse vaut de — ce que confirme . Le substrat est en excès devant : l'enzyme travaille près de son plateau, sans y être.
2. Inverser l'équation. On part de la définition, on ne récite pas une formule :
Contrôle : . Lecture : est le tiers de , et la concentration obtenue vaut la moitié de — cohérent, puisque la demi-saturation demande et qu'on est en dessous.
3. Remonter à .
On retrouve bien la valeur de l'énoncé, et l'unité est une concentration : si ton résultat sortait en µmol/(L·min), c'est que et n'ont pas été mis au bon endroit.
4. Les deux inhibitions. Le facteur d'inhibition vaut
- Inhibiteur compétitif : il occupe le site actif, un excès de substrat l'en déloge.
- Inhibiteur non compétitif : il se fixe ailleurs, le substrat ne peut pas le chasser.
Ce que cela donne à µmol/L. Sans inhibiteur, µmol/(L·min). Avec le compétitif : µmol/(L·min), soit de au lieu de . Avec le non compétitif : µmol/(L·min), soit exactement la moitié de la vitesse sans inhibiteur. Et si l'on portait à µmol/L, le compétitif ne coûterait presque plus rien (, contre sans lui), tandis que le non compétitif resterait borné par (), quelle que soit la concentration ajoutée. C'est là, et nulle part ailleurs, que les deux inhibitions se distinguent vraiment.
Bloc 4 sur 7 · Visualiser
Visualiser : l'hyperbole et ses deux paramètres
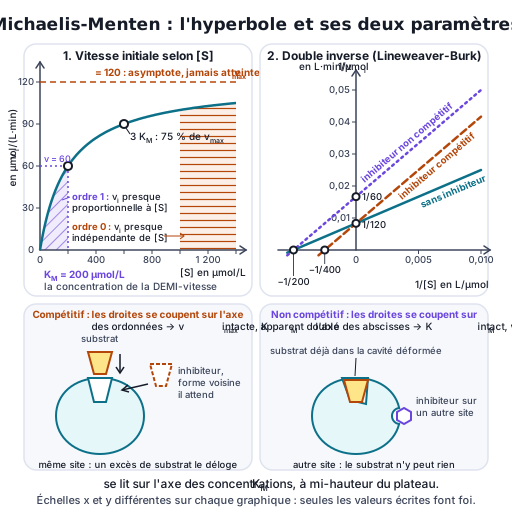
Figure (fig.biology.michaelis-menten, SVG programmatique à produire) : deux panneaux, la même préparation vue de deux façons.
- Panneau gauche — l'hyperbole de saturation. Axe horizontal : en µmol/L, gradué de à , à partir de zéro. Axe vertical : en µmol/(L·min), gradué de à . La courbe part de l'origine, monte, s'incurve et s'aplatit. Une droite horizontale en tirets à porte « : asymptote, jamais atteinte ». Une seconde horizontale en pointillés à coupe la courbe en un point marqué d'un disque, d'où descend une verticale jusqu'à l'axe des abscisses en , étiquetée « µmol/L : la concentration de la DEMI-vitesse ». Deux zones hachurées différemment sous la courbe : à gauche de , « ordre 1 : presque proportionnelle à » ; loin à droite, « ordre 0 : presque indépendante de ». Un troisième point marque , avec l'étiquette « : de ».
- Panneau droit — la représentation en double inverse. Axe horizontal , axe vertical , tous deux gradués, et l'axe horizontal prolongé du côté négatif pour que l'abscisse à l'origine soit visible. Trois droites, chacune étiquetée le long de son tracé et distinguée par son style de trait autant que par sa teinte : (1) trait plein, « sans inhibiteur », de pente , coupant l'axe vertical en et l'axe horizontal en ; (2) tirets, « inhibiteur compétitif », pente doublée, même ordonnée à l'origine, abscisse à l'origine en ; (3) pointillés, « inhibiteur non compétitif », ordonnée à l'origine doublée en , même abscisse à l'origine . Deux cartouches : « compétitif : elles se coupent sur l'axe des ordonnées — intacte » et « non compétitif : elles se coupent sur l'axe des abscisses — intact ».
- Bandeau du bas — les deux mécanismes. Deux petits schémas d'enzyme. À gauche : le substrat et une molécule de forme voisine se présentent tous deux devant la même cavité, l'une entrant, l'autre attendant ; mention « compétitif : même site, un excès de substrat le déloge ». À droite : le substrat est dans la cavité, mais une autre molécule s'est fixée sur un second site à l'écart et la cavité est représentée déformée ; mention « non compétitif : autre site, le substrat n'y peut rien ».
Ce qu'il faut lire. À gauche, se lit sur l'axe des concentrations, à mi-hauteur du plateau : c'est le dessin qui empêche de le confondre avec une vitesse. À droite, deux droites qui se croisent sur un axe disent lequel des deux paramètres l'inhibiteur a laissé intact — c'est le seul tracé qui identifie le type d'inhibition, et c'est pour cela qu'on le trace encore.
La figure en détail : la figure comprend deux graphiques et deux schémas. Le premier graphique porte la vitesse initiale d'une réaction enzymatique en fonction de la concentration en substrat, les deux axes partant de zéro : la courbe monte depuis l'origine, s'incurve et s'aplatit sans jamais atteindre une droite horizontale qui figure la vitesse maximale. Une seconde horizontale, placée à la moitié de cette vitesse maximale, coupe la courbe en un point dont on descend jusqu'à l'axe des concentrations : l'abscisse ainsi obtenue est la constante de Michaelis. Deux zones sous la courbe distinguent le domaine où la vitesse est presque proportionnelle à la concentration et celui où elle en est presque indépendante. Le second graphique porte l'inverse de la vitesse en fonction de l'inverse de la concentration : trois droites y figurent, celle de l'enzyme seule, celle obtenue avec un inhibiteur qui occupe le site actif — de pente plus forte mais coupant l'axe vertical au même endroit — et celle obtenue avec un inhibiteur fixé ailleurs sur l'enzyme — coupant l'axe vertical plus haut mais l'axe horizontal au même endroit. En bas, deux schémas montrent, pour le premier type d'inhibiteur, deux molécules se présentant devant la même cavité de l'enzyme, et pour le second, une molécule fixée sur un site distinct qui déforme la cavité alors que le substrat y est déjà.
Bloc 5 sur 7 · Formules
Ce qu'il faut retenir
| Grandeur ou énoncé | Contenu | Unité |
|---|---|---|
| vitesse limite, atteinte quand tous les sites actifs travaillent en permanence | µmol/(L·min) | |
| concentration en substrat donnant la demi-vitesse maximale | µmol/L | |
| Affinité | petit affinité forte ; grand affinité faible | — |
| Régime dilué | : , ordre 1 | — |
| Régime saturé | : , ordre 0 | — |
| Double inverse | droite de pente , abscisse à l'origine | — |
| Inhibiteur compétitif | site actif ; apparent augmenté, intacte ; effet levé par un excès de substrat | — |
| Inhibiteur non compétitif | autre site ; intact, apparente abaissée ; excès de substrat sans effet | — |
Quelques repères chiffrés. donne de ; donne ; donne ; donne . Ces quatre valeurs se recalculent en une ligne avec , et elles suffisent à contrôler tout résultat : une vitesse annoncée supérieure à , ou égale à , est fausse.
Ce qui n'est pas dans cette leçon. La démonstration de l'équation par l'état quasi stationnaire, la distinction entre et la constante de dissociation du complexe, la constante catalytique et l'efficacité catalytique, l'ajustement statistique d'une droite de double inverse, les inhibitions incompétitive et mixte, l'allostérie et la coopérativité. La détermination expérimentale du type d'un inhibiteur est évoquée par les graphiques ; elle demande un jeu complet de mesures, que les exercices de cette fiche donnent au lieu de le faire construire.
Bloc 6 sur 7 · Pièges
Pièges fréquents
- Lire comme une vitesse. C'est une concentration : celle pour laquelle la vitesse vaut la moitié de la vitesse maximale. Une réponse en µmol/(L·min) pour un est fausse avant même d'être lue. Le contrôle d'unité règle la question en deux secondes.
- Croire qu'un élevé traduit une forte affinité. C'est l'inverse : il faut alors beaucoup de substrat pour saturer l'enzyme, donc l'affinité est faible. La formulation qui protège : « mesure la quantité de substrat qu'il faut pour occuper la moitié des sites ; plus il en faut, moins l'enzyme est avide ».
- Dire que est atteinte à partir d'une certaine concentration. C'est une limite, une asymptote. On dit « la vitesse atteint de », jamais « la vitesse est maximale à partir de tant ». Une vitesse calculée égale à signale une erreur de calcul.
- Attribuer à un inhibiteur compétitif une baisse de . Il occupe le site actif, mais un excès de substrat l'en déloge : est intacte, c'est apparent qui augmente. C'est la faute que les exercices à choix multiples de cette fiche proposent systématiquement, parce qu'elle est systématiquement commise.
- Croire qu'un inhibiteur non compétitif se combat avec du substrat. Il n'est pas sur le site actif : en ajouter ne le déplace pas. ne bouge pas, baisse, et rien n'y fait.
- Confondre vitesse initiale et vitesse moyenne. La vitesse initiale se lit sur la pente à l'origine de la courbe « quantité de produit en fonction du temps », avant que le substrat ne s'appauvrisse et que le produit ne s'accumule. Une vitesse moyenne sur toute la durée du dosage est toujours plus petite, et l'équation de Michaelis-Menten ne s'y applique pas.
- Inverser numérateur et dénominateur en isolant . : au numérateur la concentration et l'écart des vitesses, au dénominateur la vitesse mesurée. Le contrôle est immédiat — le résultat doit être une concentration, et il doit augmenter quand diminue à fixée.
- Traiter la droite de double inverse comme une simple commodité. Elle change la géométrie des erreurs de mesure : les points de faible concentration, les moins fiables, s'y retrouvent les plus éloignés de l'origine et tirent la droite. C'est un outil de lecture et de diagnostic du type d'inhibition, pas une méthode d'ajustement précise.
- Oublier de vérifier l'ordre de grandeur du rapport . Ce seul rapport dit tout : est la fraction de atteinte. Si le rapport vaut et que la vitesse trouvée n'est pas voisine des trois quarts de , le calcul est faux.
Bloc 7 sur 7 · Vérifier
Vérifier : remonter à la concentration en substrat
Le modèle d'entraînement. L'exercice associé à cette leçon décrit une préparation enzymatique réelle — catalase et peroxyde d'hydrogène, uréase et urée, lysozyme et peptidoglycane, et d'autres — dont il donne deux des trois grandeurs , , , et demande la troisième, ou bien le pourcentage de la vitesse maximale atteint. Les valeurs sont construites pour que la réponse soit entière ; l'équation, elle, n'est jamais rappelée dans l'énoncé. Un modèle voisin, à choix multiples, donne le type d'un inhibiteur, sa constante et sa concentration, et demande le couple des valeurs apparentes de et de : c'est la question n° 4 de l'exemple guidé, sous forme de choix.
Énoncé type. Une solution purifiée d'uréase catalyse l'hydrolyse de l'urée en ammoniac et en dioxyde de carbone. À °C, cette préparation est caractérisée par µmol/L et µmol/(L·min). Pour quelle concentration en urée mesure-t-on une vitesse initiale de µmol/(L·min) ?
Corrigé complet.
1. Écrire l'équation avec les données.
2. Isoler . On multiplie les deux membres par , qui est strictement positif :
3. Contrôler en revenant à l'équation.
4. Lire le résultat. La vitesse demandée vaut de la vitesse maximale, et la concentration trouvée vaut : on retrouve le repère . L'urée est en large excès devant , l'enzyme travaille près de son plateau — sans l'atteindre, puisque .
Réponse : µmol/L, soit trois fois .
Auto-contrôle. Ma réponse est-elle une concentration ? Est-elle cohérente avec le rapport attendu — une vitesse aux trois quarts de exige environ trois fois ? Et ai-je vérifié que la vitesse demandée est bien inférieure à , sans quoi aucune concentration finie n'aurait convenu ?
L’exercice interactif de cette leçon attend la fin de sa relecture scientifique. L’énoncé type ci-dessus est complet : il se travaille tel quel.
Sources
- BO spécial n°1 du 11 février 2021 — programme de BCPST 1re année (SVT et mathématiques), thème « Structures et fonctions des molécules du vivant » : les enzymes, catalyseurs du vivant (cinétique michaélienne, inhibiteurs)
- D. Voet, J. G. Voet, Biochimie, De Boeck — chapitre sur la cinétique enzymatique (équation de Michaelis-Menten, représentation en double inverse, inhibitions)
- N. Campbell, J. Reece et al., Biologie, Pearson — chapitre « Introduction au métabolisme » (activité enzymatique, inhibiteurs compétitifs et non compétitifs)
Continuer
Autres leçons — Biologie
- Le croisement monohybride : prévoir la descendance pour un gène
- Chromosomes et caryotype : l'information génétique rangée par paires
- Gènes et allèles : pourquoi deux individus ne se ressemblent pas
- Reproduction sexuée : comment les chromosomes passent d'une génération à l'autre
- Arbres phylogénétiques : lire la parenté entre les espèces
- Le système nerveux : capter, décider, commander
- La communication hormonale : un message porté par le sang
- Observer au microscope
- La cellule, unité du vivant
- Classification emboîtée du vivant
- Écosystèmes et réseaux trophiques
- Digestion et nutriments
- Respiration et échanges gazeux
- La circulation sanguine
- La cellule eucaryote : des compartiments spécialisés
- L'ADN : une double hélice porteuse d'information
- La sélection naturelle : un tri sans intention
- La dérive génétique : quand le hasard seul fait évoluer
- La biodiversité : trois échelles sous pression
- Cycle cellulaire et mitose : copier, puis répartir
- La réplication de l'ADN : une copie semi-conservative
- Du gène à la protéine : transcription et traduction
- Les mutations : quand la copie change le texte
- Les enzymes : des protéines qui catalysent
- L'immunité adaptative : spécifique, amplifiée, mémorisée
- La méiose : diviser par deux, et brasser
- Deux gènes à la fois : indépendants ou liés ?
- L'équilibre de Hardy-Weinberg : le modèle de référence
- Le potentiel d'action : un message tout ou rien
- La régulation de la glycémie
- Contraction musculaire et énergie
- La photosynthèse : de la lumière à la matière
- La respiration cellulaire et l'ATP
- Le cycle du carbone
- L’immunité innée : une première défense immédiate
- La vaccination : préparer la mémoire immunitaire
- Acides aminés : ionisation, zwitterion, point isoélectrique
- Échanges membranaires : diffusion, osmose, transport actif
- La PCR : copier des millions de fois une région choisie